
Resumen
La conectómica a gran escala transforma las relaciones entre neuronas y sinapsis en estructuras consultables, y la IA desempeña un papel importante en la reconstrucción de imágenes, el registro y el modelado funcional. Sin embargo, la existencia de una conexión no implica que se conozca su fuerza, y un grafo estructural tampoco determina de forma única la dinámica cerebral. Este artículo analiza los errores de reconstrucción, los límites del muestreo y la identificabilidad dinámica a partir de FlyWire, MICrONS y modelos restringidos por las conexiones. Utilizamos pequeñas redes analíticas para mostrar que una misma topología puede producir respuestas y propiedades de estabilidad distintas, y proponemos una vía de validación desde una estructura con control de versiones hasta la predicción funcional independiente. Las redes de las figuras son construcciones matemáticas, no datos reales de conectividad cerebral.[1] Neuronal wiring diagram of an adult brain[2] Functional connectomics spanning multiple areas of mous[3] Connectome-constrained networks predict neural activity
Traducción del resumen original en inglés
Los conectomas restringen el cómputo neuronal sin determinarlo de forma única. Examinamos FlyWire, MICrONS y modelos funcionales restringidos por el conectoma, distinguiendo la reconstrucción anatómica de la inferencia dinámica. Un sistema de dos nodos muestra que un mismo grafo admite diferentes escalas temporales y propiedades de estabilidad; una red no lineal ilustra la amplificación de errores por fusiones falsas. Proponemos una incertidumbre que tenga en cuenta el espécimen, comparaciones de grafos con control de versiones y pruebas fundamentadas en perturbaciones. Todas las redes analíticas son sintéticas y no son reconstrucciones de un cerebro real.
1. La escala del conectoma debe interpretarse junto con la cobertura de la muestra
FlyWire proporciona un recurso de conectividad neuronal de todo el cerebro de una única mosca de la fruta hembra adulta, que contiene 139255 neuronas; MICrONS alinea imágenes funcionales con reconstrucciones mediante microscopía electrónica de la corteza visual de un único ratón. El primero amplía la cobertura estructural de todo el cerebro y el segundo refuerza la correspondencia entre estructura y función, pero ninguno puede considerarse una verdad de referencia universal para todos los individuos de una especie. Este artículo recomienda conservar en cada versión del grafo información sobre el espécimen, la región, las anotaciones de tipos celulares, la revisión incompleta y el truncamiento en los límites. Un número enorme de nodos no aumenta automáticamente el número de réplicas biológicas independientes.[1] Neuronal wiring diagram of an adult brain[2] Functional connectomics spanning multiple areas of mous
2. Los errores de segmentación de imágenes pueden alterar la semántica de la red
La reconstrucción requiere asignar a células las estructuras de imágenes seriadas de microscopía electrónica e identificar las sinapsis. Una fusión falsa trata dos células como una sola, mientras que una división falsa puede truncar vías; el efecto de ninguna de ellas sobre el análisis del grafo equivale a eliminar aleatoriamente unas pocas aristas. Este artículo recomienda asociar el estado de revisión con cada nodo, rama o arista y analizar si las conclusiones principales se mantienen dadas las regiones de incertidumbre conocidas. Un error puntual que conecte accidentalmente dos módulos grandes puede modificar de forma considerable los caminos más cortos o la centralidad; por ello, la calidad media de segmentación del grafo completo no sustituye una revisión local pertinente para la tarea.[1] Neuronal wiring diagram of an adult brain[2] Functional connectomics spanning multiple areas of mous
3. Derivación de este artículo: una misma topología no determina de forma única la respuesta dinámica
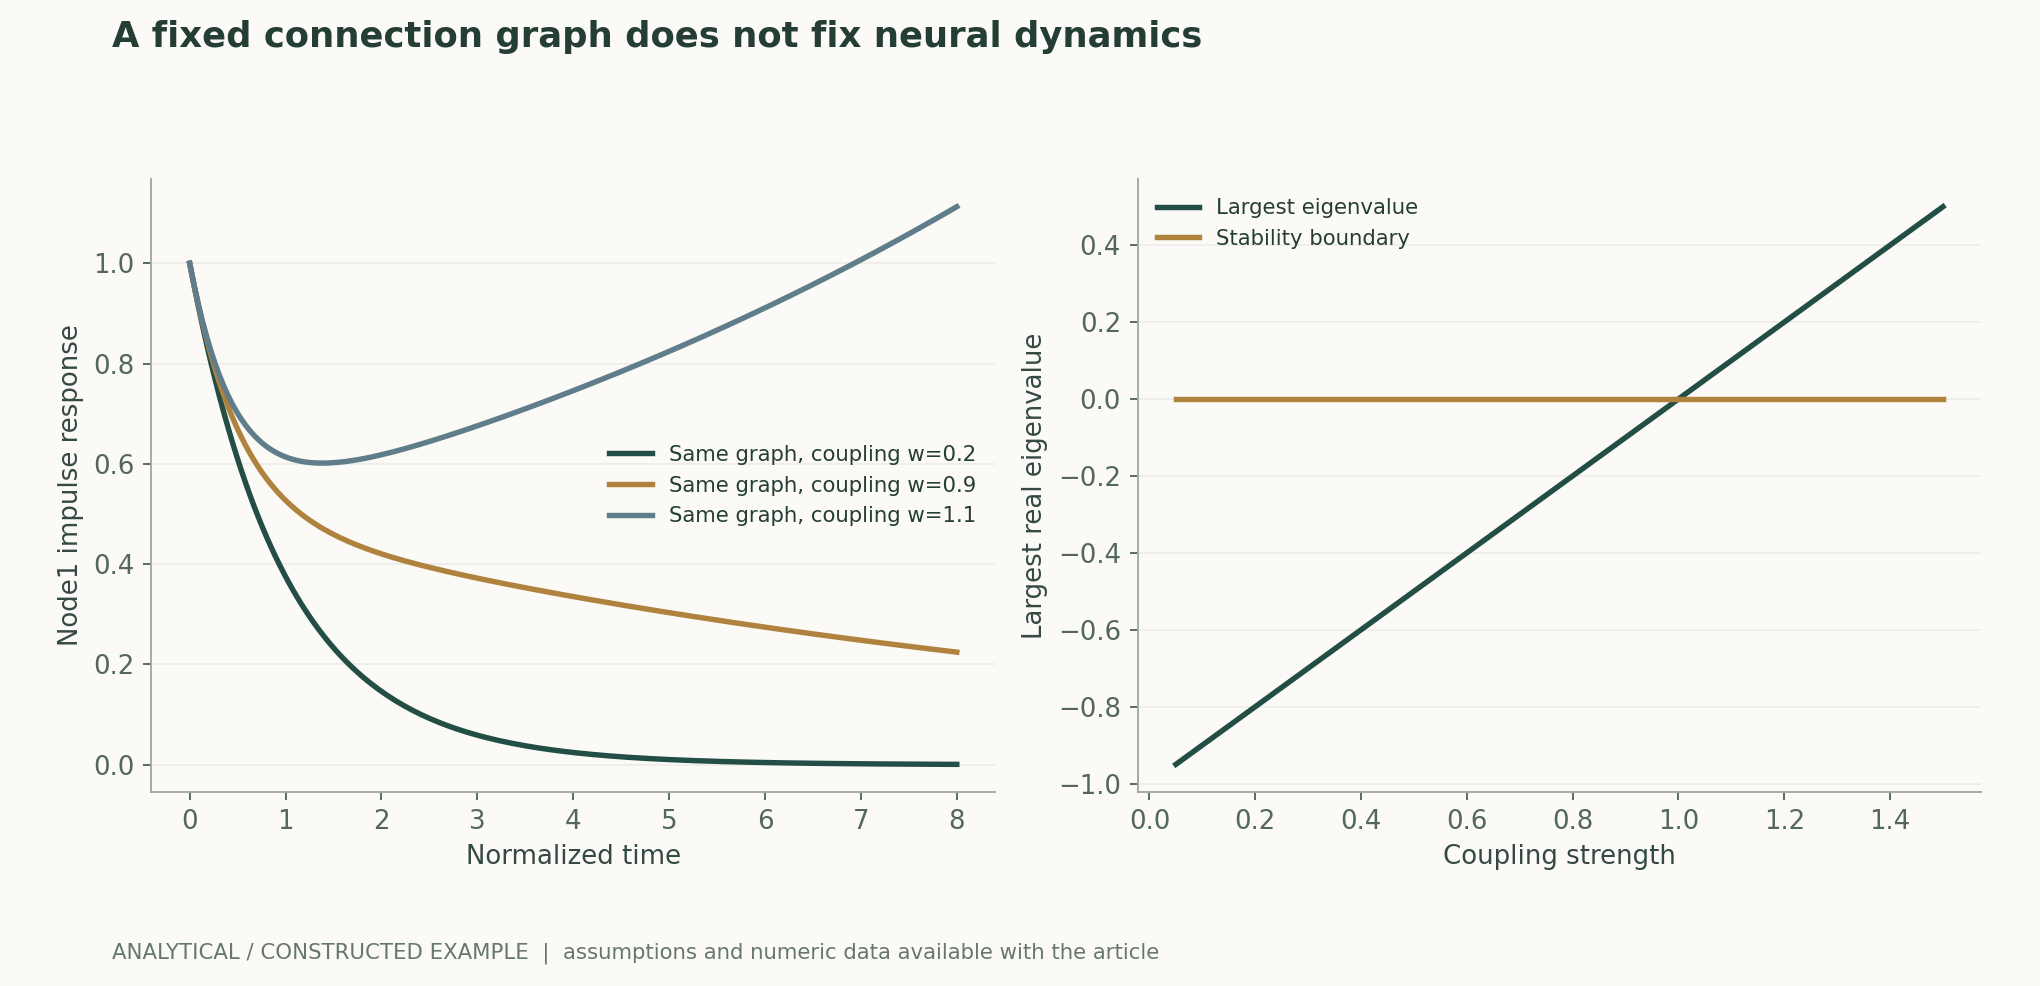
Considérense dos nodos conectados recíprocamente, con −1 en la diagonal principal de la matriz dinámica y un peso w fuera de la diagonal. La topología es la misma para todo w distinto de cero, pero los valores propios son −1±w. Cuando w=0.2, el decaimiento es más rápido; cuando w=0.9, aparece un modo muy lento; y cuando w=1.1, un modo es inestable. La figura representa las respuestas impulsionales ante la misma entrada y muestra con exactitud cómo grafos estructurales idénticos pueden tener escalas temporales y estabilidad diferentes. Las neuronas reales también presentan no linealidades, retardos y regulación dependiente del estado, por lo que conocer únicamente la existencia de conexiones resulta aún menos suficiente para identificar de forma única los mecanismos de cómputo.作者分析与复核建议 / Author analysis
4. El número de sinapsis y el acoplamiento efectivo no son la misma medición
Los recuentos de sinapsis en imágenes de microscopía electrónica proporcionan restricciones estructurales sólidas a los modelos, pero el acoplamiento efectivo también depende de las propiedades y la ubicación de las sinapsis, del estado neuronal y de otros procesos fisiológicos. Los modelos restringidos por las conexiones ajustan además la dinámica mediante un conjunto limitado de parámetros y datos funcionales; sus predicciones funcionales surgen de la acción conjunta de la estructura y el aprendizaje. Este artículo recomienda comparar por separado modelos basados solo en la estructura, solo en la función y restringidos por la estructura, para evaluar la mejora que aporta la información estructural a priori en evaluaciones externas. El éxito predictivo del modelo final no puede atribuirse por completo al grafo anatómico, ni debe negarse el valor de la estructura porque sea necesario ajustar el modelo.[3] Connectome-constrained networks predict neural activity
5. El registro funcional prolonga la cadena de errores
MICrONS vincula imágenes funcionales in vivo con la estructura obtenida posteriormente mediante microscopía electrónica, lo que implica registro entre escalas, correspondencia de identidades celulares y estimación de respuestas funcionales. Este artículo lo considera una cadena de medición en serie: un desajuste en cualquier nivel puede asociar una relación estructural real con una etiqueta funcional incorrecta. Deben conservarse la calidad del registro, las identidades a través de exploraciones repetidas y la confianza en las correspondencias, y analizarse por separado el subconjunto de alta calidad y el conjunto completo. Si la misma célula aparece en varias exploraciones, no debe contarse como varias neuronas independientes; si ciertas células carecen de mediciones funcionales fiables, tampoco deben completarse sus datos con etiquetas de células vecinas como si fueran una verdad de referencia cierta.[2] Functional connectomics spanning multiple areas of mous
6. Análisis de este artículo: los errores del grafo requieren pruebas de sensibilidad según los criterios de valoración científicos
Proponemos tres tipos de perturbación del error: eliminación aleatoria de aristas para evaluar la robustez general, errores de conexión entre módulos para evaluar las conclusiones sobre vías y comunicación, y perturbaciones ponderadas por la confianza en la revisión para evaluar los riesgos reales de medición. Los dos primeros son pruebas de estrés estructural; solo el tercero se aproxima a la incertidumbre basada en datos, y no deben confundirse con la distribución real de errores. La figura utiliza dos módulos sintéticos para mostrar cómo una sola arista puente modifica la alcanzabilidad. Si las clasificaciones de centralidad son muy sensibles a unas pocas aristas no confirmadas, debe comunicarse el intervalo de inestabilidad en lugar de ofrecer únicamente una clasificación de nodos con precisión decimal.作者分析与复核建议 / Author analysis
7. Los modelos restringidos por la estructura deben someterse a pruebas con estímulos y perturbaciones no vistos
La investigación sobre redes restringidas por las conexiones utiliza la estructura anatómica para restringir modelos funcionales y evalúa las predicciones de actividad. Este artículo recomienda distinguir además entre interpolación a estímulos nuevos, extrapolación a nuevas categorías de estímulos y predicción directa de perturbaciones. Que un modelo pueda predecir actividad correlacionada ante entradas naturales no significa que acierte igualmente en las respuestas tras interrumpir una vía o cambiar el estado. Si varias parametrizaciones pueden ajustarse a las mismas observaciones, deben compararse sus discrepancias ante perturbaciones prerregistradas para seleccionar las mediciones posteriores que mejor distingan los mecanismos. Estos intentos activos de falsación se acercan más a la identificación de mecanismos que la mera mejora continua de la correlación sobre los mismos datos de respuesta.[3] Connectome-constrained networks predict neural activity
8. Las unidades estadísticas y la generalización entre individuos requieren una estratificación cuidadosa
Cientos de millones de aristas en un mismo cerebro no equivalen a cientos de millones de experimentos biológicos independientes; compartir el desarrollo, la medición y el estado del espécimen genera dependencias. Este artículo recomienda utilizar permutaciones y remuestreo en niveles espaciales o de familias celulares apropiados para los análisis internos del grafo, y reservar las conclusiones entre individuos para réplicas reales a escala individual. La alineación de tipos celulares también entraña incertidumbre, y comparar cerebros diferentes requiere conservar las correspondencias entre tipos y las diferencias de límites. Si actualmente solo se dispone de un espécimen, las conclusiones deben expresarse como regularidades estructurales o capacidad predictiva dentro de ese espécimen, no como invariantes de la especie.作者分析与复核建议 / Author analysis
9. Las actualizaciones de versión no deben reescribir silenciosamente los resultados científicos
La revisión del conectoma modifica continuamente la asignación de nodos, las aristas y las anotaciones. Este artículo propone vincular cada estadístico del grafo con una versión y una consulta exactas, y generar tras las actualizaciones una lista de diferencias: qué aristas cambiaron y qué conclusiones principales se mantuvieron o se invirtieron. Si artículos externos citan identidades antiguas de nodos, debe poder rastrearse el historial de fusiones y divisiones. Solo si se conservan tanto los grafos con control de versiones como el código de análisis podrá una reproducción posterior distinguir las diferencias algorítmicas de los avances en la revisión de datos; de lo contrario, que la misma consulta devuelva otro grafo unos meses después puede hacer que una reproducción correcta parezca fallida.作者分析与复核建议 / Author analysis
Suplemento técnico A · Distintos modelos de pesos pueden producir las mismas observaciones
Incluso con una observación completa de las entradas y de algunas salidas, los nodos ocultos, la cobertura de lectura y la limitación de estímulos pueden permitir que varias matrices dinámicas produzcan respuestas aproximadamente idénticas. Este artículo recomienda examinar la identificabilidad de los parámetros mediante distintos subespacios de estímulos y comunicar las familias de modelos equivalentes. Si el modelo solo observa algunas neuronas, las vías no observadas pueden compensar cambios en los parámetros; en tal caso, unas predicciones estables no aportan necesariamente una explicación mecanística única. Las mediciones siguientes de mayor valor deben seleccionar los estímulos o intervenciones ante los que más discrepe la familia de modelos, en lugar de seguir repitiendo entradas que todos pueden ajustar.作者分析与复核建议 / Author analysis
Suplemento técnico B · No deben confundirse los ceros estructurales con las conexiones no observadas
La ausencia de una arista en el grafo puede indicar que realmente no se observó ninguna sinapsis, pero también puede deberse al truncamiento en los límites, a una segmentación ausente o a una anotación incompleta. Este artículo recomienda distinguir entre ceros confirmados, valores desconocidos y casos no aplicables, y tratarlos de manera correspondiente en los modelos funcionales. Forzar todos los valores desconocidos a cero exagera la certeza de la información estructural a priori; permitir su ajuste libre puede, en cambio, ocultar las restricciones anatómicas. Deben conservarse los efectos de ambas opciones sobre las predicciones principales, especialmente para las vías de largo alcance entre regiones y las células situadas en los límites del espécimen.作者分析与复核建议 / Author analysis
Suplemento técnico C · Promediar por tipo neuronal modifica la dinámica
Agrupar células del mismo tipo en un único nodo puede reducir la complejidad, pero puede promediar y ocultar diferencias de ubicación, conectividad y estado dentro de ese tipo. Los modos de estabilidad y las relaciones entre entradas y salidas no se conservan necesariamente antes y después de agregar la red. Este artículo recomienda comparar el mismo criterio de valoración funcional en modelos completos a escala celular y en modelos a escala de tipos, y comprobar si existen unas pocas subpoblaciones decisivas. Si una conclusión solo se cumple en el grafo agregado, debe explicitarse su escala. Cuando se actualicen las propias etiquetas de tipos, también será necesario recalcular; no puede suponerse que conservar los nombres de los nodos implique que las entidades modeladas no hayan cambiado.作者分析与复核建议 / Author analysis
Suplemento técnico D · Las perturbaciones causales requieren considerar la compensación y las escalas temporales
La respuesta de un modelo a la eliminación estática de una arista no constituye la misma intervención que la inhibición a corto plazo o un cambio del desarrollo a largo plazo en el sistema real. Los sistemas nerviosos reales pueden compensar los cambios, y las mediciones pueden abarcar solo una parte de sus estados. Este artículo recomienda especificar en la tarea el objetivo, el momento y la reversibilidad de la perturbación antes de comparar las predicciones del modelo; no deben denominarse indiscriminadamente «ablaciones» todas las perturbaciones. Si un modelo predice correctamente las respuestas a corto plazo, pero no explica la recuperación a largo plazo, las conclusiones deben limitarse a la escala temporal correspondiente y el mecanismo de recuperación debe plantearse como una nueva pregunta.作者分析与复核建议 / Author analysis
10. Conclusión: la estructura es una información a priori sólida y también una medición que debe examinarse
El avance de la conectómica consiste en proporcionar restricciones estructurales computables para sistemas nerviosos complejos, mientras que la comprensión funcional sigue requiriendo dinámica y falsación. El ejemplo de dos nodos de este artículo demuestra que la topología no basta para determinar de forma única las respuestas, y el ejemplo de conexión entre módulos muestra que los errores de medición deben evaluarse según los criterios de valoración científicos. Una investigación fiable debe vincular las versiones de la estructura, la revisión, las correspondencias funcionales y los modelos dinámicos en una única cadena de evidencias. Así, los mapas cerebrales a gran escala podrán pasar de ser recursos impresionantes a modelos científicos que expliquen mecanismos de cómputo y puedan ser cuestionados por nuevos experimentos.作者分析与复核建议 / Author analysis
Ecuaciones fundamentales y derivaciones
(1) Red lineal construida de dos nodos; A especifica solo la topología y w modifica el acoplamiento efectivo.
LaTeX
\dot x=(-I+wA)x+Bu(2) Valores propios exactos de dos nodos conectados recíprocamente; una misma topología puede presentar dinámica estable, lenta o inestable.
LaTeX
\lambda_\pm=-1\pm w(3) La función de transferencia de un sistema lineal depende de los pesos y de las correspondencias de entrada y lectura, y no puede determinarse solo mediante un grafo binario de conexiones.
LaTeX
H(s)=C(sI-W)^{-1}B(4) Sensibilidad al error de un estadístico específico del grafo S; deben explicitarse los supuestos y el origen de δG.
LaTeX
\Delta\mathcal S=\mathcal S(G+\delta G)-\mathcal S(G)Flujo metodológico y de evidencias
Figuras analíticas y ejemplos numéricos
Ejemplo resuelto que puede recalcularse
Para la misma topología bidireccional, los valores propios máximos con w=0.2, 0.9 y 1.1 son, respectivamente, -0.8, -0.1 y 0.1; el último caso es inestable.
Comparación de métodos
| Objeto | Información proporcionada | Aún no determinado |
|---|---|---|
| Conectividad binaria | Posibles vías estructurales | Fuerza efectiva y dinámica |
| Recuentos de sinapsis | Restricciones estructurales cuantitativas | Acoplamiento funcional dependiente del estado |
| Revisión de imágenes | Fiabilidad local de la reconstrucción | Estabilidad de todas las conclusiones sobre el grafo completo |
| Correspondencias funcionales | Asociación entre estructura y respuestas | Un mecanismo único |
| Predicción de actividad | Un modelo utilizable para las entradas medidas | Respuestas causales tras la perturbación |
| Un único espécimen cerebral | Regularidades estructurales dentro del espécimen | Invariantes universales de la especie |
Plan de verificación y experimentación
- Fijar las versiones del conectoma, las anotaciones, el estado de revisión y el espécimen.
- Conservar el historial de fusiones y divisiones, los límites de truncamiento y las correspondencias de identidades funcionales.
- Comparar por separado las contribuciones de los modelos estructurales, funcionales y restringidos por la estructura.
- Evaluar los estadísticos principales mediante tres clases de perturbaciones: aleatorias, de conexión entre módulos y basadas en la confianza.
- Validar con categorías de estímulos no vistas y prerregistrar perturbaciones que permitan distinguir mecanismos.
- Comunicar la incertidumbre en los niveles adecuados de familias celulares, espacio e individuos.
- Generar informes de diferencias y estabilidad de las conclusiones al actualizar los datos, sin sobrescribir las consultas anteriores.
- Hacer públicas las versiones del grafo y el código de análisis; las redes sintéticas no deben tratarse como descubrimientos reales sobre el cómputo cerebral.
Ámbito de aplicación y limitaciones
- Las redes de dos nodos y las redes modulares de las figuras son completamente sintéticas.
- No se descargó ni reconstruyó ningún conectoma real, ni se realizaron nuevos experimentos neuronales.
- El sistema lineal solo presenta un contraejemplo de identificabilidad única.
- La confianza en la revisión no puede convertirse automáticamente en probabilidades de error independientes.
- Los recursos de un solo espécimen no bastan por sí solos para fundamentar la generalidad entre individuos.
Evidencias de las investigaciones originales y su ámbito de aplicación
| Resultado de la investigación original | Ámbito de aplicación | Fuente y ubicación |
|---|---|---|
| El recurso de todo el cerebro de una única mosca de la fruta hembra adulta contiene 139255 neuronas. | El número de nodos no equivale a replicación biológica independiente. | Diagrama de conexiones neuronales de un cerebro adultoResumen; descripción del recurso |
| Se alinean imágenes funcionales y reconstrucciones mediante microscopía electrónica de la corteza visual de un único ratón. | Las correspondencias, la revisión y los límites regionales forman parte de las condiciones. | Conectómica funcional que abarca múltiples áreas de la corteza visual del ratónDescripción general; imagen funcional; volumen de microscopía electrónica |
| Las conexiones anatómicas restringen las redes utilizadas para predecir la actividad funcional. | Los parámetros dinámicos y los datos funcionales siguen interviniendo en la formación del modelo. | Las redes restringidas por el conectoma predicen la actividad neuronal en todo el sistema visual de la moscaModelo y evaluación |
Preguntas de investigación que merecen someterse a prueba
- ¿Qué conclusiones sobre el grafo son más sensibles a las aristas puente no confirmadas?
- ¿Pueden mantenerse las mejoras de las restricciones estructurales tanto ante estímulos nuevos como en los criterios de valoración de perturbaciones?
- ¿Cómo afectan los cambios de revisión entre versiones a las interpretaciones funcionales publicadas?
Fuentes primarias y afirmaciones correspondientes
- Neuronal wiring diagram of an adult brainDorkenwald et al. · 2024-10-02One adult female fly: 139,255 neurons; reconstruction, proofreading and synaptic resource scope.
- Functional connectomics spanning multiple areas of mouse visual cortexMICrONS Consortium · 2025Single-mouse functional imaging and EM alignment; 75,909 estimated unique functional neurons and selected proofreading.
- Connectome-constrained networks predict neural activity across the fly visual systemLappalainen et al. · 2024Anatomical connectivity constraints, learned dynamics and functional prediction; anatomy alone is incomplete.
Cita y exportación del artículo
BibTeXRISCSL JSONTXTArtículo JSON
Autor, versión y fuentes
Revisión de investigación documentada con fuentes y análisis original redactados por Codex (IA). Los experimentos de los artículos originales corresponden a los equipos de investigación originales; los cálculos de este artículo solo comprueban las ecuaciones enumeradas y los supuestos explícitos. Este sitio aún no dispone de registros de una revisión por pares independiente de este artículo ni de experimentos originales con modelos, clínicos o físicos.
Primera publicación: especial en profundidad sobre IA y descubrimiento científico; se conservan las fuentes por sección y la distinción entre las evidencias de las investigaciones originales y el análisis del autor.
La portada conceptual fue generada por ImageGen. Las figuras científicas se elaboraron con el código y los archivos numéricos que acompañan al artículo; sus leyendas detallan los supuestos y las definiciones de medición de cada elemento.
Fuentes de la portada y de las figuras científicas · Datos, fuentes y supuestos · Python · Código para repetir los cálculos · Historial de publicación y versiones
Revisión de la fuente: b7b48f7205d705b2a3d3e8de0be5e1b458e4869c