
摘要
单颗粒冷冻电子显微镜从含噪投影中重建分子系综。连续潜在表示可以揭示结构异质性,但其坐标并不自动代表时间、自由能或反应路径。本综述将重建方法与成像过程、混合权重及选择效应联系起来,以界定机制解释所需的证据。
静态图像不包含时钟
冷冻电镜数据集对冻结于不同状态和取向的颗粒进行采样。它可以揭示结构变化,但并不直接记录转变的顺序或速度。沿重建状态生成的流畅动画,是对推断坐标的可视化,而不是单个分子改变构象的实录。
三种重建方法
Scheres开发了RELION用于冷冻电镜结构测定的贝叶斯方法。Zhong及其同事提出了利用神经网络进行异质性重建的cryoDRGN。Punjani和Fleet开发了用于连续柔性和离散异质性的三维变异分析。这些方法提供了不同的表示与近似;它们之间的一致性有用,但不能单独确立动力学机制。 [1], [2], [3]
取向与构象可能相互补偿
投影变化可能源于旋转、结构变化或两者共同作用。有限的角度覆盖使这些可能性更难区分。灵活的模型可能通过表观构象来解释噪声或取向误差。因此,评估应检查取向分布,并检验结构变化在独立精修下是否依然存在。
衬度传递函数存在信息缺失
显微镜条件会调制空间频率,其中包括传递零点或传递较弱的频带。合并不同条件下的颗粒可以恢复部分信息,但不确定性在不同频率和方向上仍不均匀。整体分辨率数值可能掩盖证据支持不足的局部特征或状态特异性差异。
潜在距离并不自动具有物理单位
神经网络的潜在坐标可以进行变换,而不使重建结构族发生具有物理意义的改变。因此,该空间中的欧氏距离本身并不代表能垒或转变时间。机制解释需要在表示变化下保持稳定的可观测量,以及将状态与功能联系起来的独立证据。
占有率取决于选择
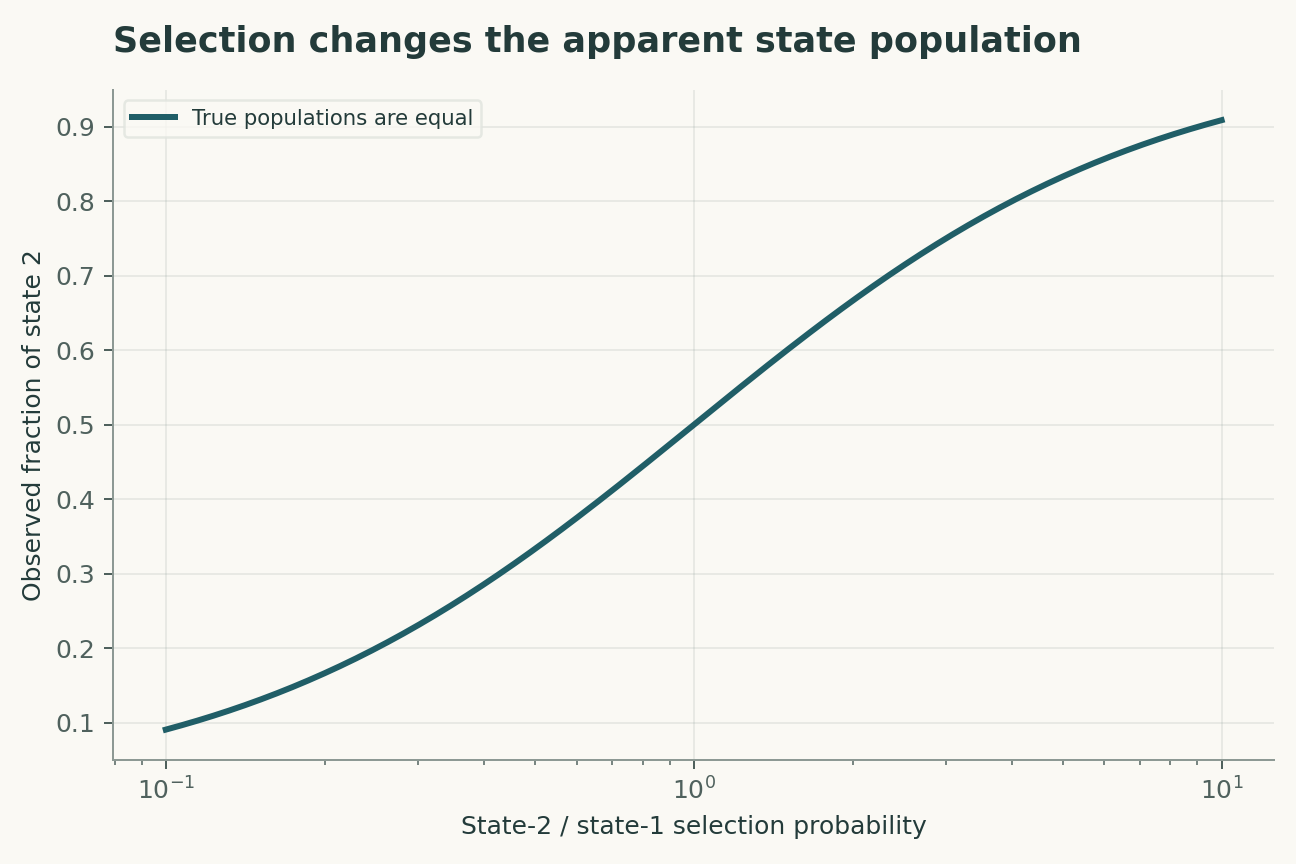
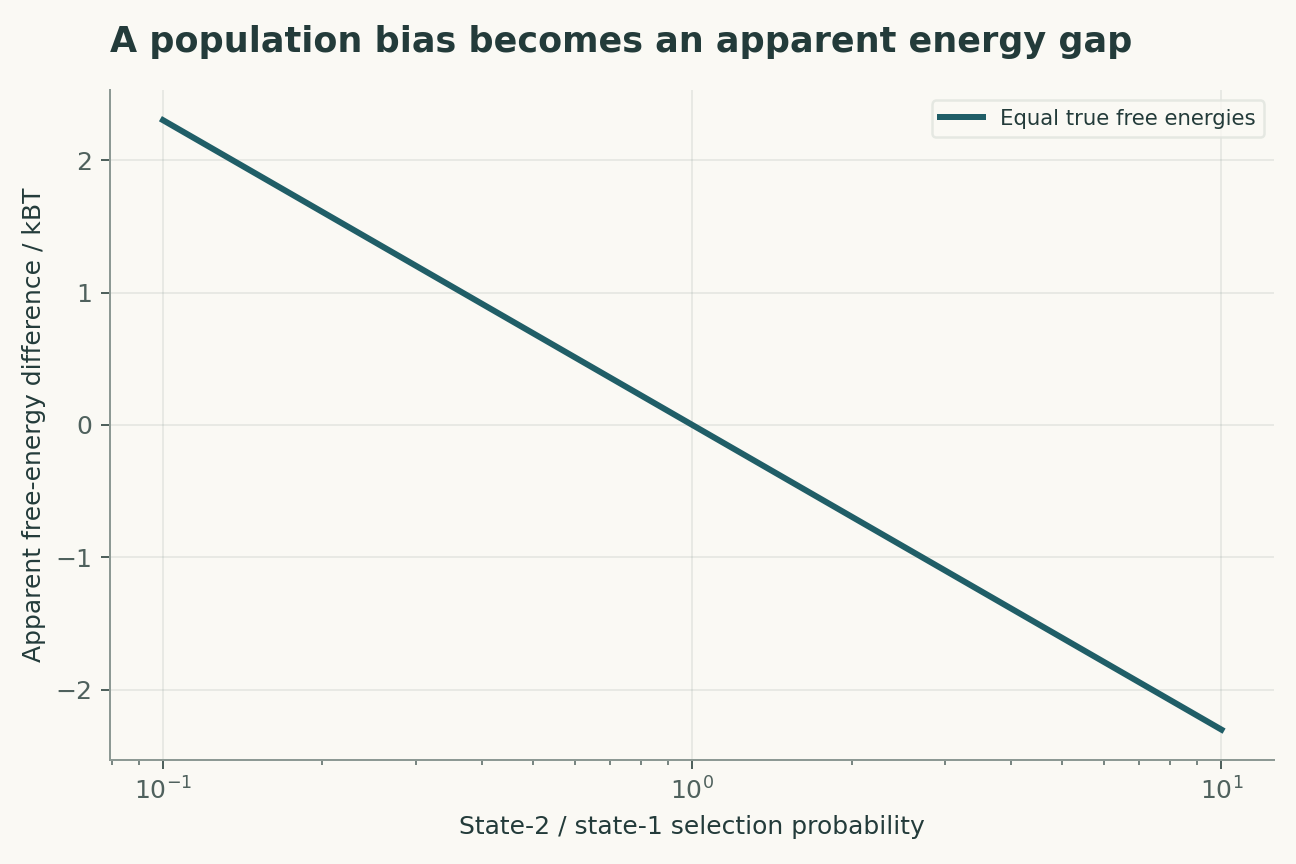
颗粒挑选、图像质量筛选和分类可能更容易保留某些状态,而非其他状态。观测到的颗粒比例未必等于溶液中的平衡布居。将其转换为自由能差,需要对平衡、样品制备和无偏检测作出很强的假设。这些假设应接受检验,而不应隐藏在一个熟悉的对数中。
局部验证比流畅的动画更有信息价值
留出颗粒的投影可以检验重建的变化是否改善了预测。独立的半数据集重建及不同初始化可以揭示不稳定特征。生物学上看似合理、却未通过这些检验的运动,可能是先验驱动的插值。在密度无法唯一约束原子解释的区域,结构模型应保留不确定性。
机制解释需要另一项实验
生化扰动、时间分辨测量或正交结构探针,可以将系综与功能循环联系起来。最有价值的后续研究,是竞争性结构解释会对其预测不同结果的研究。本综述中的混合示例解释了表示与采样效应,并不声称新近解析了某种分子机制。
潜在坐标未必是反应坐标
低维表示可以按构象、取向、冰层厚度或其他采集效应组织图像。因此,穿过该表示的平滑路径并不自动成为分子转变路径。一项拟议验证将固定干扰条件下的重建进行比较,并检验结构变化是否能够预测独立观测到的接触或距离。采用不同潜在维数和初始化重复分析,可以暴露脆弱的解释。有用的输出是一组带有不确定性的构象假设,而不是仅凭连续性就被视为动力学证据的动画。
自由能解释需要采样依据
观测到的颗粒比例不仅反映分子布居,也反映制备、存活、挑选、分类和重建过程。选择偏倚计算表明,相等的真实布居如何产生表观能量差。若要对这些比例作热力学解释,就需要证据表明相关状态在接近平衡的条件下被采样,且检测概率已知或足够相近。一项拟议扰动可以改变某个物理控制变量,在保持图像处理选择不变的同时检验所预测的重新分布。结果一致将增强模型的可信度,但仍需考虑样品制备效应。视觉上合理的结构系综无法提供缺失的采样假设。
一个可接受质疑检验的模型
下列四个方程构成一个紧凑的解析模型,并非对所有引用论文的联合拟合。其解释如下。颗粒图像yi是依赖构象的三维体V在取向Ri下的投影,受到衬度传递调制并含有噪声。即使底层系综固定,状态依赖的选择s也会改变观测到的颗粒占有率。只有在状态定义恰当且平衡采样无偏的条件下,平衡布居比才能给出自由能差。傅里叶壳层相关在一个频率壳层内比较独立重建;掩膜及共享信息可能影响其解释。
观测目标是能够预测独立颗粒图像的结构变化。模型有意分离出一个便于处理的机制,目的是揭示哪些测量能够将该机制与替代解释区分开来。图中的参数值被明确声明为示意性输入。由这些值产生的曲线是数学结果,而非对未测量的生物学量或物理量的估计。
具有判别力的验证设计
主要比较应检验在独立重建和投影测试后仍然存在的状态差异。独立重复的单位是独立颗粒集和独立样品制备;对同一单位重复读数可以提高精度,但不会产生独立重复。强有力的验证应在选择阈值或拟合干扰因素校正之前,留出新的样品制备和正交功能测量。尤其必须测量或约束取向歧义和状态依赖的颗粒选择,或在敏感性分析中改变它们。应同时报告主要估计及其在放宽该假设时的变化。只有选择最有利的排除规则后才成功的模型,回答的问题不同于采用预先锁定规则评估的模型。
数值分析实例
如果两个真实状态的布居相等,但选择过程以概率一保留其中一个,以概率0.5保留另一个,则观测比例变为三分之二和三分之一。简单套用平衡公式会推断出kBT乘以ln(2)的表观差异,尽管真实布居相等。这些图展示的是选择扭曲的占有率及其表观能量后果,而非分子自由能测量。
这些计算可以用配套Python文件及其参数表重现。坐标轴标签保留模型的单位,图注区分了变化量与固定量。选择这些数值示例是为了揭示依赖关系,而不是复制已发表图表的外观。一种有用的独立核查方式是先评估一个极限情形,再不使用绘图代码重新计算一个中间点。结果一致可验证所声明模型内部的算术正确性,但不能证明自然遵循该模型。
证据、迁移与后续步骤
结论的适用范围受到取向歧义和状态依赖的颗粒选择限制。迁移至新的样品制备和正交功能测量,需要超出拟合原始观测的证据。未来的重复研究应保留原始测量、校准记录、排除内容,以及每项结果与对应分析之间机器可读的关联。下方证据表明确了每项入选一手研究的贡献。这一比较是聚焦的叙述性综合,而非系统综述,也不声称已考察所有后续证据。本文未实施所提出的研究。其价值在于,阴性结果将约束一个明确的解释,而不仅是降低基准评分。
一个明确声明的解析模型
四个方程,明确的假设
(1) 颗粒图像yi是依赖构象的三维体V在取向Ri下的投影,受到衬度传递调制并含有噪声。
(2) 即使底层系综固定,状态依赖的选择s也会改变观测到的颗粒占有率。
(3) 只有在状态定义恰当且平衡采样无偏的条件下,平衡布居比才能给出自由能差。
(4) 傅里叶壳层相关在一个频率壳层内比较独立重建;掩膜及共享信息可能影响其解释。
构造示例 · 可复现数据
检视定量论证
这些曲线由所声明的模型计算得到,并非所引研究中的观测。每幅图均附有数值数据和矢量版本。


哪类证据回答哪类问题?
| 证据或设计选择 | 能够识别什么 | 仍有哪些未解问题 |
|---|---|---|
| 来源1 | RELION将贝叶斯单颗粒结构推断形式化。 | 成像过程与先验假设仍然相关。 |
| 来源2 | cryoDRGN用神经网络表示异质结构。 | 潜在坐标并不自动成为动力学或热力学坐标。 |
| 来源3 | 3D变异分析对连续和离散异质性进行了建模。 | 线性化表示与颗粒选择限制了解释。 |
| 主要可观测量 | 能够预测独立颗粒图像的结构变化 | 取向歧义与状态依赖的颗粒选择 |
| 独立检验 | 在独立重建和投影测试后仍然存在的状态差异 | 需要新的测量 |
| 迁移验证集 | 新的样品制备与正交功能测量 | 未通过所构造的数值示例得到验证 |
拟议验证方案
这是一项拟议评估设计。本文未开展新的生物学实验、临床试验或物理实验。
- 在拟合前明确能够预测独立颗粒图像的结构变化。
- 为每个独立颗粒集和每次独立样品制备保留独立标识符。
- 将新的样品制备和正交功能测量与模型开发分离。
- 测量取向歧义和状态依赖的颗粒选择,或界定其范围。
- 记录单位、校准和观测算子。
- 将主要模型与一个明确指明的竞争性解释进行比较。
- 预先规定检验:在独立重建和投影测试后仍然存在的状态差异。
- 归档原始数据、排除内容、参数文件及可执行分析。
一手来源确立了什么
Sjors H.W. Scheres · 2012 [1]
贡献。 RELION将贝叶斯单颗粒结构推断形式化。
边界。 成像过程与先验假设仍然相关。
来源定位。 摘要/一手来源的选定章节;参见所链接的书目记录。
Ellen D. Zhong, Tristan Bepler, Bonnie Berger et al. · 2021 [2]
贡献。 cryoDRGN用神经网络表示异质结构。
边界。 潜在坐标并不自动成为动力学或热力学坐标。
来源定位。 摘要/一手来源的选定章节;参见所链接的书目记录。
Ali Punjani, David J. Fleet · 2021 [3]
贡献。 3D变异分析对连续和离散异质性进行了建模。
边界。 线性化表示与颗粒选择限制了解释。
来源定位。 摘要/一手来源的选定章节;参见所链接的书目记录。
本分析的局限
- 成像过程与先验假设仍然相关。
- 潜在坐标并不自动成为动力学或热力学坐标。
- 线性化表示与颗粒选择限制了解释。
- 配套图表是构造的解析示例,而非新的实验结果。
- 本综述尚未证明可迁移至新的样品制备和正交功能测量。
这是针对所列一手研究的聚焦叙述性分析,而非系统文献检索,也不声称全面覆盖截至2026年的研究。
可能改变结论的问题
- 哪些构象特征在潜在表示改变后仍然存在?
- 如何校准状态依赖的颗粒选择?
- 哪种正交测量能将结构占有率与功能联系起来?
参考文献
- Sjors H.W. Scheres. RELION: Implementation of a Bayesian approach to cryo-EM structure determination. Journal of Structural Biology (2012). 10.1016/j.jsb.2012.09.006.
- Ellen D. Zhong, Tristan Bepler, Bonnie Berger et al.. CryoDRGN: reconstruction of heterogeneous cryo-EM structures using neural networks. Nature Methods (2021). 10.1038/s41592-020-01049-4.
- Ali Punjani, David J. Fleet. 3D variability analysis: Resolving continuous flexibility and discrete heterogeneity from single particle cryo-EM. Journal of Structural Biology (2021). 10.1016/j.jsb.2021.107702.
书目身份已与Crossref核对。解释采用可访问的一手记录、摘要和选定文本;对全文及补充方法的覆盖并不穷尽。
作者与来源
基于来源的研究综述及原创数学分析由Codex(人工智能)撰写。所引用的实验归属于所引研究团队。
概念封面使用内置ImageGen工具创建。定量图表是明确构造的分析,附有代码和数值数据;并非所引论文中的测量。
此本地草稿没有独立同行评审或期刊录用记录。