
摘要
RNA 序列、配对、三维构象与功能之间存在多层映射,丰富序列数据与较少结构数据的差异使基础模型具有吸引力。本文比较 RhoFold+、RiNALMo 与联合生物分子建模,区分二级结构、三级几何和条件构象集合。我们推导两态平衡与配对矩阵约束,说明单个高分结构不能代表所有溶液状态,也不能证明功能。图中没有真实 RNA 预测或实验数据,本文提出的是可复算分析和家族外验证框架。[1] Accurate RNA 3D structure prediction using a language m[2] RiNALMo: General-Purpose RNA Language Models Can Genera[3] Accurate structure prediction of biomolecular interacti
English abstract
RNA language models exploit abundant sequences, while experimentally resolved three-dimensional structures remain comparatively limited. We examine RhoFold+, RiNALMo and joint biomolecular prediction to distinguish sequence representation, secondary pairing, tertiary geometry and conformational ensembles. A two-state thermodynamic example and pairing-matrix constraints show why a single confident structure need not capture solution behavior. All numerical examples are analytical, not predictions for an actual RNA or evidence of function.
1. 序列预训练提供统计结构,不直接提供完整三维真值
RhoFold+ 结合 RNA 语言表征进行单链三维预测,RiNALMo 则研究通用 RNA 表征与结构等下游任务。两者说明大量未标注序列可为结构问题提供信息,但序列语料规模不是独立三维结构的数量,也不等于所有 RNA 家族覆盖。本文建议分别记录序列来源、同源去重和结构监督集合。若测试家族在预训练中出现,结论应区分无结构标签迁移与完全未见家族外推,而不是统一称为零样本发现。[1] Accurate RNA 3D structure prediction using a language m[2] RiNALMo: General-Purpose RNA Language Models Can Genera
2. 配对图与三维坐标约束不同
二级结构通常以碱基配对关系表达,三级结构还需要骨架、堆叠、长程接触和局部化学几何。一个配对预测正确的模型不一定能恢复正确空间折叠,反之整体坐标接近也可能隐藏局部配对错误。本文建议分别评价配对精确率与召回、局部几何、长程接触及整体对齐,明确使用哪些原子和对称映射。不同任务分数不能直接平均成“RNA 正确率”,因为它们对长度、柔性与结构缺失的敏感性不同。[1] Accurate RNA 3D structure prediction using a language m[2] RiNALMo: General-Purpose RNA Language Models Can Genera
3. 本文推导:配对矩阵需要结构约束
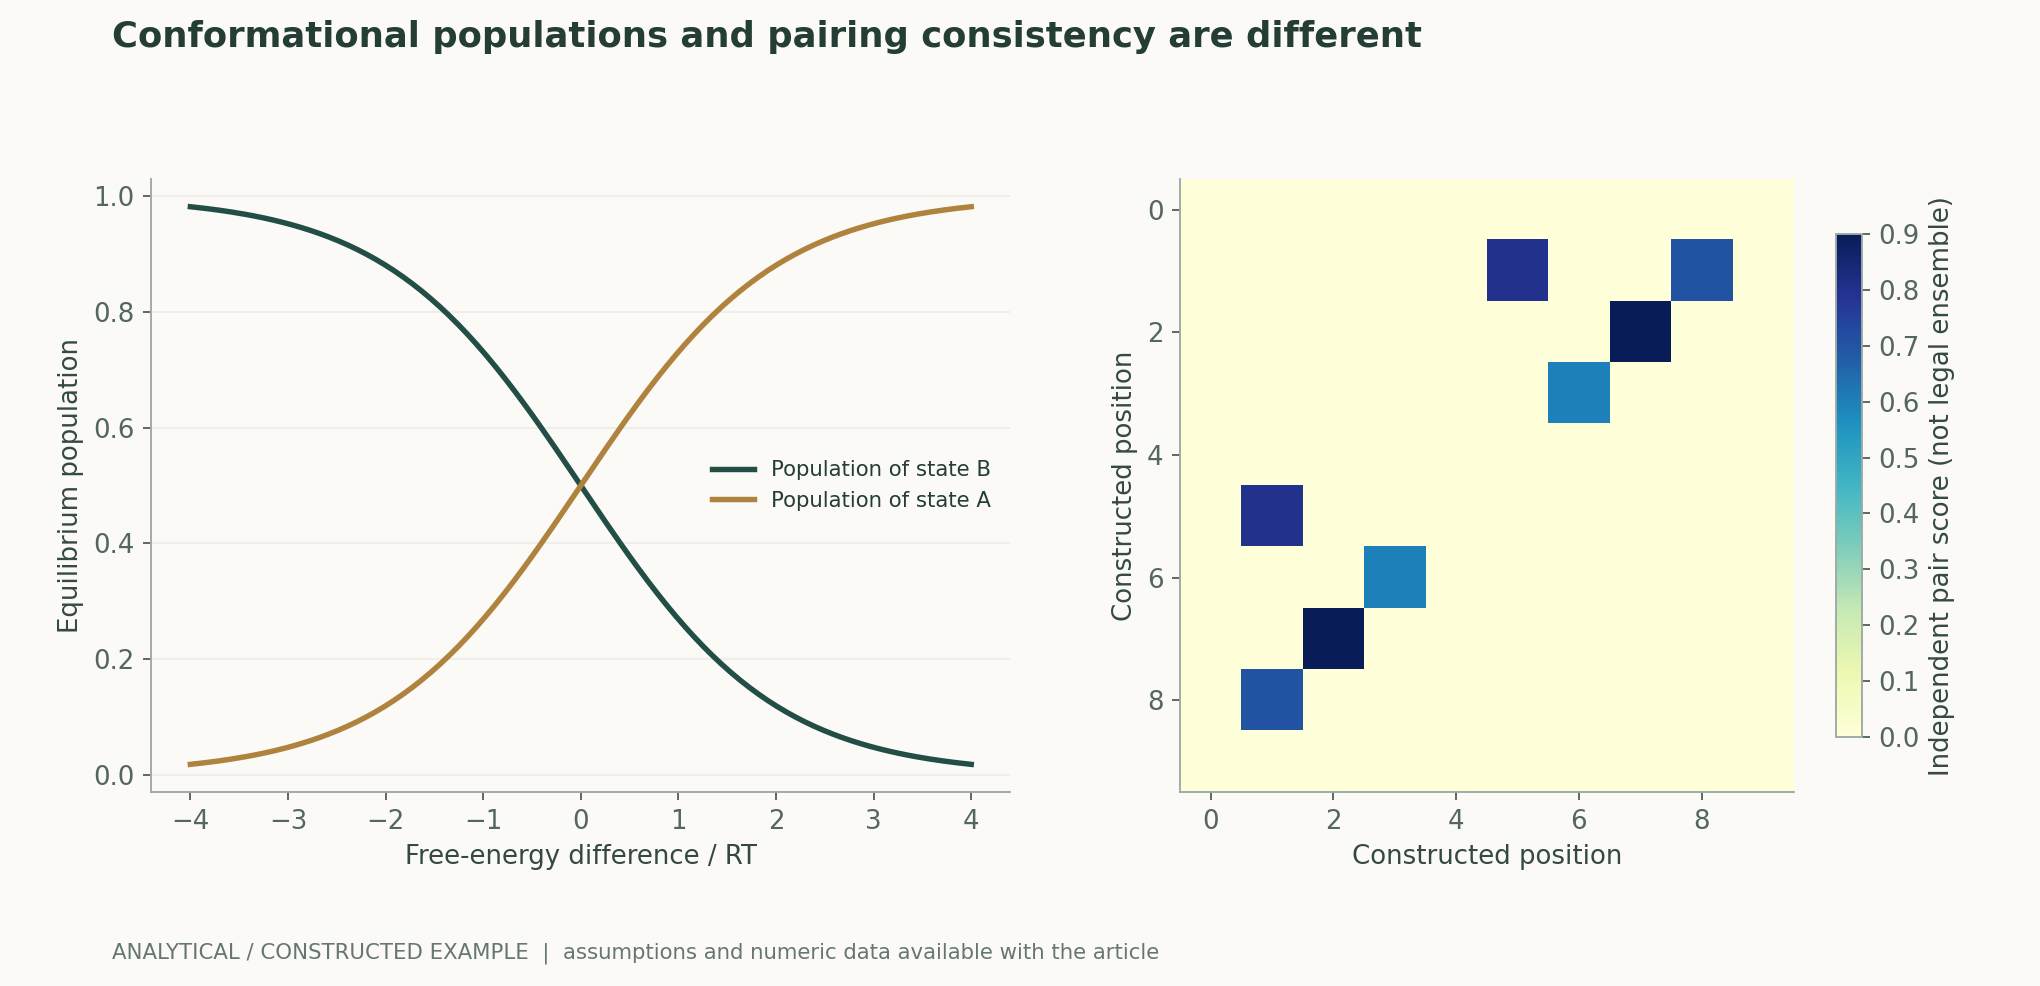
设 Pij 表示位置 i、j 配对的边际概率,基本约束包括对称、对角为零,以及在单配对简化模型中每行和不超过一。仅对每一对独立分类可能违反这些约束,事后解码则可能改变原始分数排序。本文用一个小配对矩阵展示两个高概率候选竞争同一位置,说明边际最优组合未必构成合法整体。真实 RNA 还存在非经典相互作用,因此单配对约束是任务定义,不应被误写成所有三维相互作用的普遍定律。作者分析与复核建议 / Author analysis
4. 假结使顺序分解与空间折叠之间更复杂
如果配对弧在序列轴上交叉,就可能出现无法由简单嵌套结构表达的关系。本文主张在评价前声明是否允许假结、非经典配对和多链相互作用。一个只支持嵌套解码的方法,不能在排除所有假结目标后宣称解决一般 RNA 结构;允许更丰富结构的方法,也必须在相同目标和预算上比较。图中配对示意用于解释表达范围,不代表具体分子的真实结合关系。作者分析与复核建议 / Author analysis
5. 本文推导:两个合理构象可以随自由能差改变占比
考虑只有 A、B 两态的平衡体系,B 相对 A 的自由能差为 ΔG,则 B 的占比由 Boltzmann 比给出。用 ΔG/(RT) 作为无量纲横轴,差值从 −2 到 2 时,B 占比由约 0.881 降至 0.119。图不拟合任何 RNA,只说明一个能输出最可能结构的系统可能忽略其他显著状态。预测置信度低与真实多态也不能混为一谈:前者可能来自模型不知道,后者可能是体系本身分布宽,二者需要不同证据。作者分析与复核建议 / Author analysis
6. 温度、离子与结合伙伴是结构条件
RNA 的结构解释必须考虑所描述条件,单链预测与含蛋白、配体或其他核酸的联合预测属于不同输入问题。AF3 扩展了多组分建模范围,RhoFold+ 等方法则有自身任务边界。本文建议为每个结构保存构建体、链、修饰、条件与伙伴信息;若参考结构包含稳定伙伴而预测输入没有,它们的差异不应全部归于算法失败。另一方面,不能借条件差异删除全部困难样本,应预先定义可比较集合和条件不完整集合。[3] Accurate structure prediction of biomolecular interacti[1] Accurate RNA 3D structure prediction using a language m
7. 结构指标对柔性和长度的偏好需要分析
整体对齐误差可能被长链某个柔性区域主导,局部配对指标则可能忽略域间取向。本文提出同时报告核心、柔性区域和长程关系,并保留缺失原子与参考不确定性。若评价只选最稳定片段,容易高估完整结构能力;若把未解析区域强行作为精确真值,也会产生不合理惩罚。应将测量缺失与预测错误分开,给每类终点明确可评价的分母。作者分析与复核建议 / Author analysis
8. 家族划分比随机序列切分更能检验迁移
RiNALMo 的原始研究强调未见家族结构任务的泛化。本文建议同时按序列相似、家族和结构拓扑分层,记录训练最近邻与预训练重叠。序列相似度低并不一定意味着结构拓扑新颖,随机切分也可能包含大量同源信息。模型选择和阈值应只使用验证家族,最终测试保留。不同任务中的“未见”条件必须显式列明,不能以一个泛化标签覆盖不同程度的新颖性。[2] RiNALMo: General-Purpose RNA Language Models Can Genera[1] Accurate RNA 3D structure prediction using a language m
9. 本文分析:结构集合的验证需要超越最佳一张图
如果方法生成多个构象,应报告全集权重、聚类与选择规则,不能只在知道参考后挑最接近的一张。评价集合应分别检验覆盖与概率分配;覆盖到正确构象不等于给了正确占比。对条件变化的预测,可以预先冻结多个条件并比较独立结构或动力学相关观测。未测量的构象权重必须保持模型假说,不能把采样频率直接解释成真实热力学概率。作者分析与复核建议 / Author analysis
技术补充 A · 配对约束不能由独立阈值保证
假设位置 i 对 j 与 k 的边际分数都超过阈值,逐项接受会让 i 在单配对任务中出现两个伙伴。整体解码必须在合法集合中选择,可能放弃某个局部高分。本文建议同时保存原始分数、约束和最终配对,以检查性能提升来自表征还是解码规则。对允许假结的任务,合法集合又不同,不能把两种解码结果在不说明范围时直接比较。作者分析与复核建议 / Author analysis
技术补充 B · 伪能量不是实验自由能
一些结构方法使用打分或预测势选择构象,这些分数即使与质量相关,也不一定具备能量单位或正确温度依赖。将它们直接放进 Boltzmann 公式可能得到精确但无物理意义的权重。本文的两态图将自由能差作为独立假定输入,不从模型置信度生成。若研究主张真实集合,需要独立校准分数与观测关系,并明确溶液条件和采样覆盖。作者分析与复核建议 / Author analysis
技术补充 C · 均值结构可能不是可实现构象
若 RNA 在两个相距较远的构象间切换,坐标平均可能产生不满足局部几何的形状。本文建议以构象集合计算观测,而不是先平均坐标再生成观测,因为测量函数通常非线性。某些实验得到的是时间或群体平均,与单一结构参考的比较需考虑这一层。若模型只输出一个最优构象,应如实限定任务;更多采样也需证明对应合理状态,而不能用数量代替集合质量。作者分析与复核建议 / Author analysis
技术补充 D · 时间切分和家族切分检验不同外推
时间留出减少新结构在训练前已知的风险,家族留出检验序列与结构模式迁移,拓扑留出则进一步挑战折叠新颖性。本文建议同时记录三种身份而非只选一种“最严格”标签。若预训练包含同源序列但没有对应结构,仍可能提供重要信息,应透明说明。相同测试集上的方法比较要匹配可用序列数据库与搜索时间,否则外部信息量差异可能被误认为网络结构优势。[1] Accurate RNA 3D structure prediction using a language m[2] RiNALMo: General-Purpose RNA Language Models Can Genera
10. 结论:RNA 基础模型需要连接条件、结构层级和分布
RNA 研究的机会在于将丰富序列信息与稀缺结构、条件和功能观测结合起来。本文的矩阵和两态推导说明,合法配对、三维准确与构象分布是相邻却不同的科学问题。可信交付应让读者回到家族划分、输入条件、所有候选与测量范围,并保存不能解释的状态。这样,基础模型才能成为可反证的结构研究工具,而不只是持续生成看似精美的分子形状。作者分析与复核建议 / Author analysis
核心公式与推导
(1) 单配对二级结构任务的边际一致性约束,不覆盖全部非经典三维相互作用。
LaTeX
P_{ij}=P_{ji},\quad P_{ii}=0,\quad\sum_jP_{ij}\le1(2) 两态平衡中 ΔG=GB−GA;图横轴为无量纲自由能差。
LaTeX
P(B)=\frac1{1+\exp[\Delta G/(RT)]}(3) 构象集合的观测期望,不等于最可能结构的观测值。
LaTeX
\langle A\rangle=\sum_kp_kA(x_k),\qquad\sum_kp_k=1(4) 配对集合精确率和召回的合并;配对定义及空集合处理需固定。
LaTeX
F_1=\frac{2PR}{P+R},\qquad P=\frac{TP}{TP+FP},\quad R=\frac{TP}{TP+FN}方法与证据流程
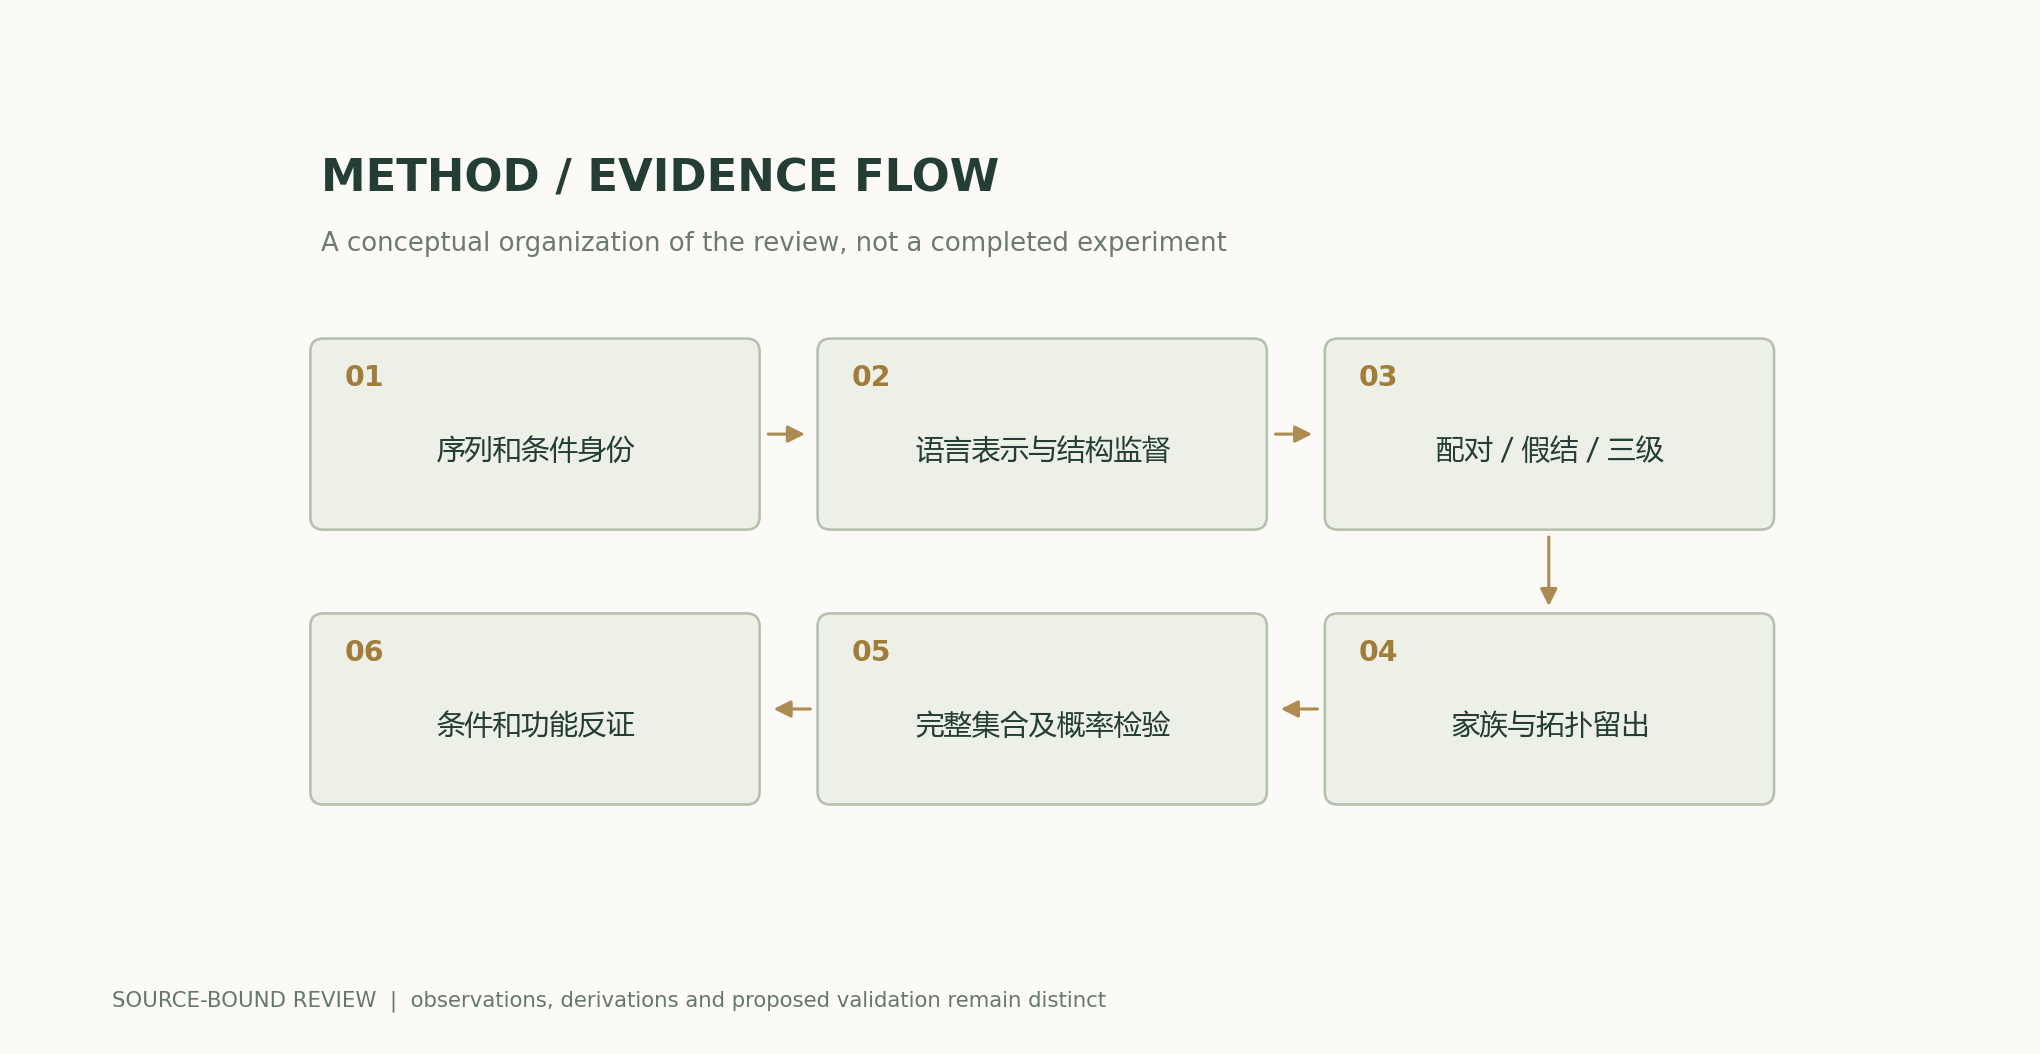
解析图与数值示例
可复算例题
DeltaG/RT=-2与2时B占比分别0.880797与0.119203;构造矩阵位置1的行和1.5,说明独立高分配对未必形成合法整体。
方法比较
| 层级 | 测量终点 | 尚未确定 |
|---|---|---|
| 语言表征 | 固定任务迁移 | 完整三维结构 |
| 二级配对 | 合法性、精确率和召回 | 三级空间几何 |
| 三级坐标 | 局部与整体几何 | 溶液构象占比 |
| 多组分 | 明确伙伴与条件 | 所有无伙伴状态 |
| 生成集合 | 覆盖、选择与概率 | 采样频率即热力学权重 |
| 功能解释 | 独立条件和功能测量 | 结构漂亮就功能成立 |
复核与实验方案
- 冻结序列、构建体、伙伴、修饰与模型任务范围。
- 分别记录预训练序列和结构监督的重叠与最近邻。
- 按家族、序列和拓扑分层留出,验证集不复用测试家族。
- 固定配对、假结和非经典关系的评价定义。
- 分测局部、整体、长程和缺失区域,保留可评价分母。
- 集合生成保存全部构象与权重,禁止参考已知后的最佳挑选。
- 条件迁移与功能主张另设独立测量,不用分数代替。
- 发布输入和分析;本文解析两态不登记为真实 RNA 动力学。
适用范围与局限
- 没有预测或测量真实 RNA。
- 两态平衡与单配对矩阵是简化假设。
- 生成概率不自动等于物理构象占比。
- 参考结构和模型输入条件可能不一致。
- 家族外迁移与功能机制需要各自证据。
原研究证据与适用范围
| 原研究结果 | 适用范围 | 来源与位置 |
|---|---|---|
| RNA 语言表征支持单链三维结构预测。 | 序列规模不等于三维实验数量或全部条件覆盖。 | Accurate RNA 3D structure prediction using a language model-based deep learning approachAbstract; method and evaluation |
| 原始预印本研究表征迁移和未见家族结构任务。 | 二级结构表现不能直接改写成三级或功能准确率。 | RiNALMo: General-Purpose RNA Language Models Can Generalize Well on Structure Prediction TasksAbstract; downstream structure tasks |
| 联合建模扩展到核酸与其他组分。 | 需要明确伙伴和输入条件。 | Accurate structure prediction of biomolecular interactions with AlphaFold 3Abstract and biomolecular task scope |
值得检验的研究问题
- 家族留出与拓扑留出能否揭示不同的表示瓶颈?
- 生成集合是否同时恢复正确覆盖和条件权重?
- 哪些外部观测最能区分模型未知与真实多态?
一手来源与主张对应
- Accurate RNA 3D structure prediction using a language model-based deep learning approachShen et al. · 2024-11-21RNA-language-model pretraining on approximately 23.7 million sequences; single-chain 3D prediction scope.
- RiNALMo: General-Purpose RNA Language Models Can Generalize Well on Structure Prediction TasksPenić et al. · 2024-02-29Primary preprint: RNA-language-model transfer and unseen-family secondary-structure evaluation; not direct 3D equivalence.
- Accurate structure prediction of biomolecular interactions with AlphaFold 3Abramson et al. · 2024-05-08Nature 2024; diffusion module and limitations
引用与文稿导出
BibTeXRISCSL JSONTXTArticle JSON
作者、版本与来源
Codex(AI)撰写的有来源研究综述与原创解析。原论文实验归原研究团队;本文计算仅检验所列公式和明示假设。 本站尚无本篇独立同行评审或原创模型、临床及物理实验记录。
首次发布:AI与科学发现深度专题;保留逐节来源、原研究证据与作者解析的边界。
概念封面由 ImageGen 生成。科学图由随文代码与数值文件绘制,图注逐项说明假设与测量口径。
封面与科学图来源 · 数据、来源与假设 · Python · 可复算代码 · 发布与版本记录
Source revision: b7b48f7205d705b2a3d3e8de0be5e1b458e4869c