
Resumen
La senescencia celular puede restringir la proliferación, coordinar la reparación y mantener señales tisulares perjudiciales. Estas funciones no son intercambiables, y un marcador del estado celular no establece cuál predomina. Esta revisión conecta estudios de eliminación celular y cicatrización de heridas en ratones con un modelo compartimental de producción y eliminación de células senescentes y de respuesta tisular. El análisis muestra por qué una menor carga de marcadores puede acompañarse tanto de una mejoría como de una reparación deficiente, y desarrolla una arquitectura de estudio que separa la actuación sobre la diana del beneficio.
Un estado con más de una consecuencia
Una detención persistente del ciclo celular es una propiedad de una célula; la reparación tisular satisfactoria es una propiedad de un sistema coordinado. Tratar la primera como explicación suficiente de la segunda omite varios niveles causales. Un tejido puede acumular células con el ciclo detenido porque aumenta el daño, disminuye la eliminación inmunitaria o se activa repetidamente un programa de reparación transitorio. Por tanto, una misma carga medida puede representar procesos diferentes. Nuestra pregunta central no es si las células senescentes son universalmente beneficiosas o perjudiciales, sino qué combinación de producción, persistencia, localización y señalización hace que su eliminación modifique un resultado tisular especificado.
Qué establecen los estudios de intervención
Baker y sus colaboradores utilizaron la eliminación genética de células positivas para p16 en un modelo murino progeroide en 2011, y examinaron células positivas para p16 de aparición natural y la duración de la vida saludable en ratones en 2016. Demaria y sus colaboradores demostraron una contribución beneficiosa de las células senescentes a la cicatrización de heridas mediante la señalización de PDGF-AA en ratones. En conjunto, estos estudios motivan una pregunta causal dependiente del contexto. No establecen que todas las células positivas para p16 tengan un estado idéntico, que todas las estrategias de eliminación tengan una selectividad equivalente ni que una intervención en ratones defina un tratamiento para el envejecimiento humano. [1], [2], [3]
La carga es un balance, no un reloj
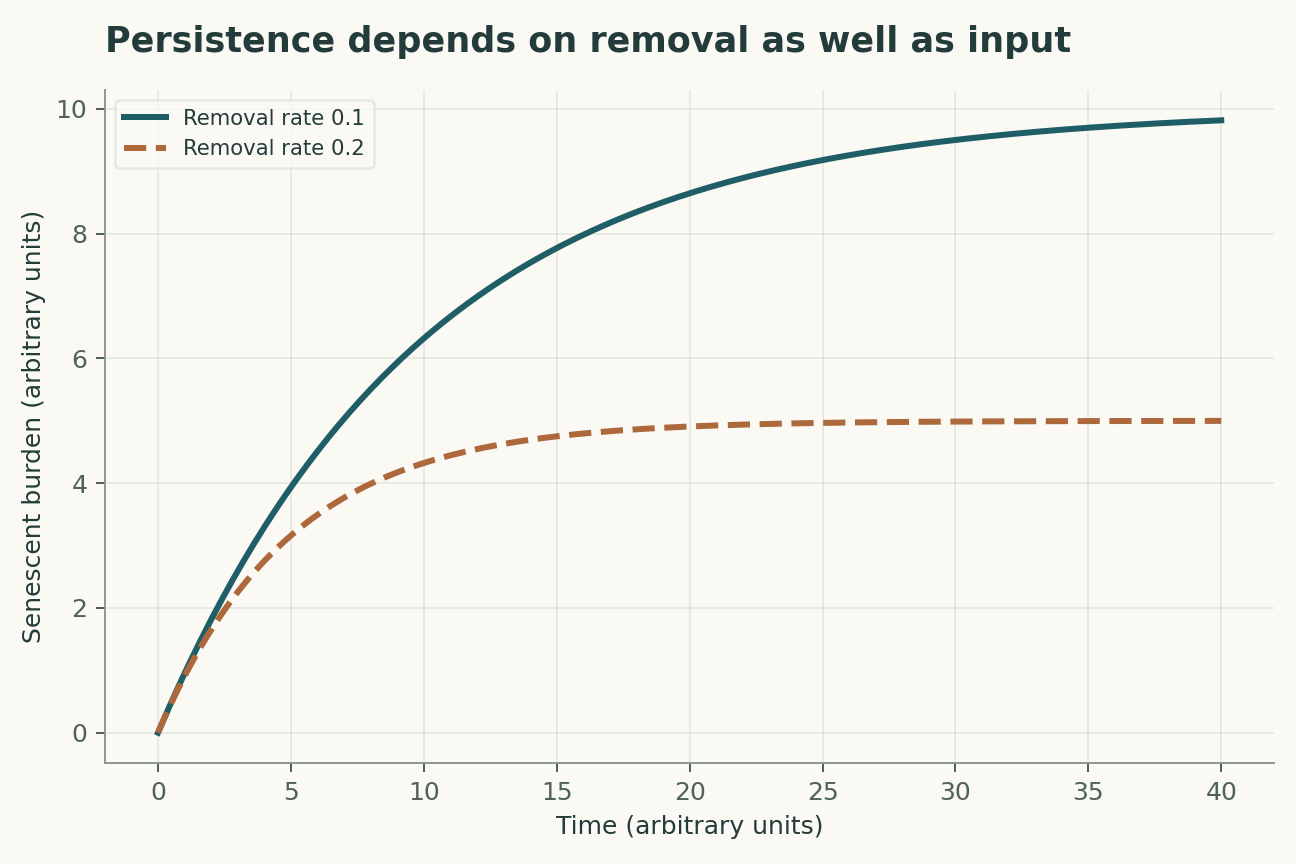
Sea S el número de células en un estado definido operacionalmente, I la tasa de entrada y k la tasa de eliminación por célula. Un balance simple da una carga estacionaria I/k. Duplicar la carga podría deberse a duplicar la entrada o a reducir la eliminación a la mitad; un recuento transversal no permite elegir entre ambas posibilidades. La distinción importa porque suprimir la entrada podría prevenir el daño, mientras que aumentar la eliminación podría retirar células después de que el daño se produzca. Una instantánea del estado es insuficiente para reconstruir los flujos que lo produjeron. Se necesitan mediciones longitudinales e información independiente sobre el recambio celular para identificar el balance.
La selección mediante un marcador cambia la pregunta
Un experimento de eliminación suele dirigirse a un marcador molecular, no a una categoría biológica observada a la perfección. La sensibilidad determina a cuántas células previstas se llega; la especificidad determina cuántas otras células resultan afectadas. Ninguna de las dos se deduce de la reducción porcentual del marcador elegido. Si la intervención suprime la expresión del marcador sin eliminar las células pertinentes, un resultado aparentemente favorable de actuación sobre la diana puede ser engañoso. A la inversa, eliminar células positivas para el marcador de un compartimento poco abundante pero importante puede modificar la función sin apenas alterar una media global. Los análisis deben comunicar por separado la diana operacional, su validación y la afirmación biológica.
Un pulso transitorio y una fuente persistente
Considérese una lesión breve que produce un pulso de entrada en el estado. Después del pulso, S decae exponencialmente cuando la eliminación es de primer orden. Las lesiones repetidas pueden mantener una carga aunque las células individuales sean de vida corta. Una población persistente puede surgir, en cambio, de una tasa de entrada pequeña y una eliminación lenta. Estos mecanismos generan calendarios de intervención y riesgos diferentes. Tomar muestras únicamente justo antes y después de una intervención puede pasar por alto el rebote, los déficits tardíos de reparación o la compensación por otras células. La resolución temporal de la observación debe elegirse para distinguir los mecanismos alternativos, no para maximizar un descenso visualmente llamativo.
Las señales tienen alcance espacial
Un factor secretado no actúa en todas partes a la concentración medida en un extracto tisular. La difusión, la degradación, la unión extracelular y la captación determinan su alcance. En un medio homogéneo ideal, una distancia característica es proporcional a la raíz cuadrada del cociente entre la difusividad y la tasa de degradación. Por tanto, duplicar la degradación acorta el alcance sin requerir menos células productoras. Una población perivascular y una población epitelial pueden tener consecuencias diferentes con la misma abundancia. Las mediciones espaciales deben preservar esta distinción. La concentración global de citocinas es útil como variable observable agregada, pero no permite establecer qué células vecinas encontraron una señal ni cuánto duró su exposición.
El beneficio y el coste pueden compartir un productor
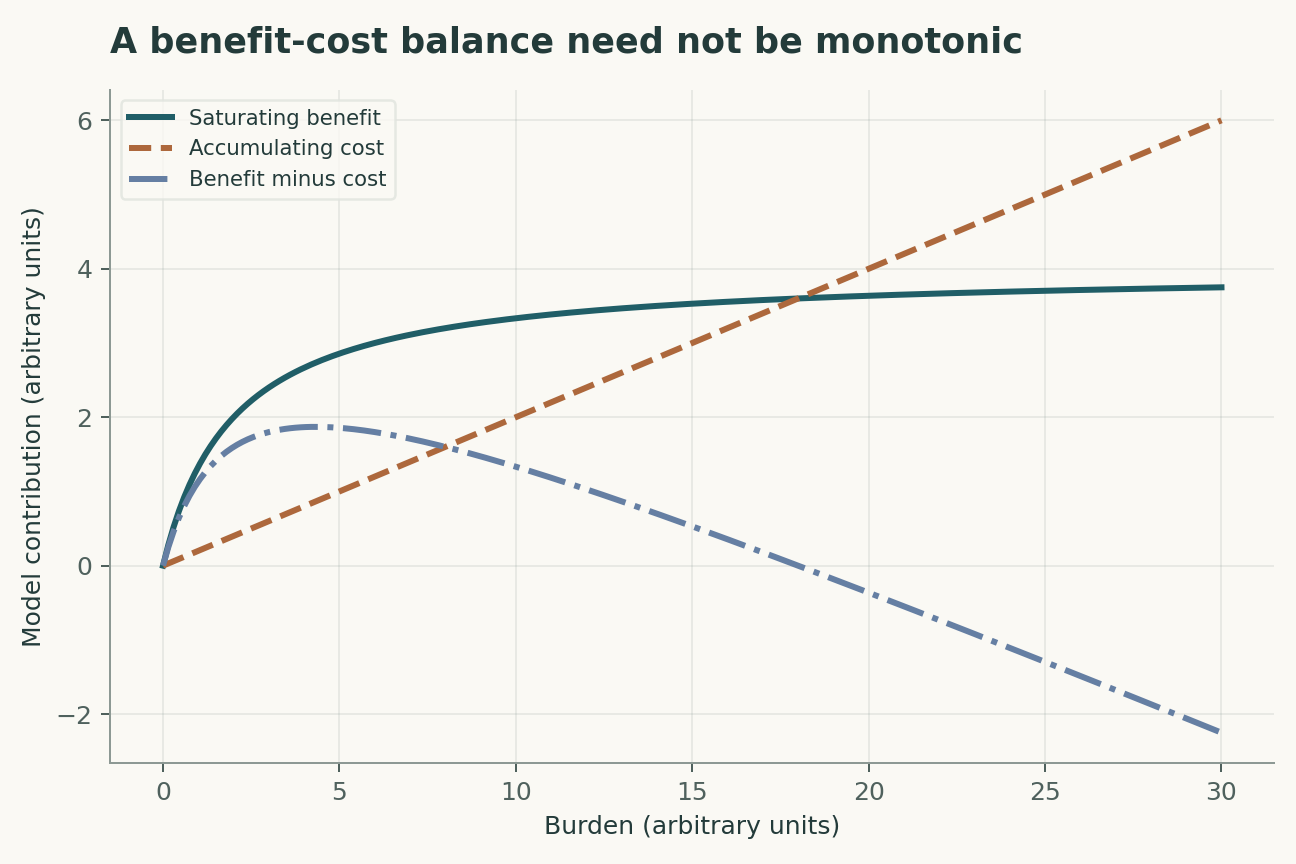
Un modelo mínimo de respuesta tisular puede incluir una contribución reparadora que aumenta y se satura con S y una contribución al daño que aumenta con la exposición prolongada. La diferencia no tiene por qué ser monótona. Este es un argumento construido deliberadamente, no un ajuste a los estudios citados: un mecanismo útil con una abundancia baja y transitoria puede resultar costoso cuando se mantiene. De ello se sigue que es improbable que de un solo tejido y un único momento surja un umbral universal de carga deseable. La superficie de respuesta pertinente incluye la fase de la lesión, la localización celular, el estado del productor, la susceptibilidad del receptor y la duración de la exposición.
Las fracciones de eliminación pueden ocultar cantidades residuales absolutas
Supóngase que una intervención elimina el 80 por ciento de una población medida. Partir de 10 unidades arbitrarias deja 2; partir de 100 deja 20. Una misma actuación fraccional sobre la diana puede dejar cargas residuales biológicamente distintas. Si una respuesta posterior se satura, una reducción grande puede modificar muy poco la función. Si la respuesta tiene un umbral, una reducción modesta puede tener un efecto grande cerca de ese umbral. Ambas son posibilidades matemáticas plausibles. Comunicar porcentajes sin recuentos basales, contexto espacial y un modelo de respuesta dificulta las comparaciones entre estudios. Las mediciones absolutas y la incertidumbre deben acompañar a las reducciones relativas siempre que el ensayo lo permita.
El criterio de valoración debe resistir una explicación alternativa
La mejora del rendimiento después de una intervención podría reflejar una inflamación alterada, cambios en otro tipo celular al que también se dirige la intervención o un efecto farmacológico directo no relacionado con la eliminación. Un diseño convincente separa estas vías. La actuación sobre la diana debe medirse independientemente del criterio de valoración funcional; una segunda intervención con distintas propiedades de efectos fuera de la diana puede comprobar la convergencia. El rescate de un mediador propuesto solo es informativo si ese rescate no modifica de forma independiente el criterio de valoración a través de otra vía. El objetivo es una cadena de predicciones que discriminen entre explicaciones, no una acumulación de marcadores correlacionados. Ningún panel único de biomarcadores elimina la necesidad de un modelo causal explícito.
Una arquitectura de estudio específica del tejido
Un diseño preclínico útil estratificaría por fase de la lesión antes de la intervención, especificaría el compartimento tisular de interés y recogería mediciones repetidas durante la reparación y la recuperación. La aleatorización debe realizarse a nivel del organismo cuando la intervención sea sistémica. Múltiples campos de un mismo tejido son observaciones anidadas, no animales independientes. El análisis debe preespecificar un criterio de valoración funcional primario, otro de actuación sobre la diana y otro de daño sensible a una reparación deficiente. La evaluación enmascarada y un grupo de comparación emparejado temporalmente abordan alternativas evidentes. Estos son principios de diseño propuestos, no el informe de un nuevo experimento ni un protocolo operativo de tratamiento.
El objetivo de la IA es un estado observable
Un modelo de imágenes entrenado con un panel de tinciones aprende relaciones con esas etiquetas. No descubre automáticamente una categoría universal de senescencia ni predice el beneficio de la eliminación. Las etiquetas de entrenamiento pueden codificar el tipo de tejido, el lote de tinción, la gravedad del daño o el tamaño celular. Por tanto, la evaluación debe reservar organismos y lotes de adquisición fuera del entrenamiento, y comprobar si el modelo separa una alteración de la intensidad del marcador de una alteración del número de células. La calibración importa cuando las probabilidades predichas se agregan para estimar la carga tisular. Una clasificación de alta confianza puede seguir sin aportar información causal; la decisión posterior prevista debe determinar qué evidencia adicional es necesaria.
Análisis desarrollado y límites de extrapolación
En el modelo complementario, la entrada se fija en una unidad celular arbitraria por unidad de tiempo. Las tasas de eliminación de 0.1 y 0.2 producen cargas estacionarias de 10 y 5. Partiendo de cero, ambas trayectorias se aproximan a sus respectivos equilibrios, de modo que una observación temprana puede confundir un equilibrio menor con una acumulación más lenta. El tiempo necesario para alcanzar la mitad del equilibrio es el logaritmo natural de dos dividido por k. La segunda figura utiliza un término de reparación saturante menos un coste lineal de la carga y muestra su diferencia en función de S. Su punto de cambio de tendencia depende de los coeficientes elegidos; no es un óptimo terapéutico. La demostración respalda la necesidad de medir tanto el flujo como el resultado, dejando la estimación de parámetros biológicos reales a los experimentos.
Por qué un resultado negativo puede ser informativo
La ausencia de mejora de un criterio de valoración funcional tras confirmar la eliminación no demuestra que el estado al que se dirige la intervención sea irrelevante. El criterio puede ser poco sensible, la eliminación puede ocurrir después de una lesión irreversible o un déficit reparador opuesto puede anular un beneficio. Estas alternativas deben distinguirse prospectivamente. Medir el daño estructural irreversible antes de la intervención puede delimitar el componente recuperable. Un segundo criterio de valoración sensible a la reparación puede revelar la anulación. Por el contrario, no lograr eliminar las células previstas dice poco sobre su papel causal. Registrar estos modos de fracaso por separado evita que un ensayo negativo se convierta en una mezcla ininterpretable de fallo de administración, fallo de la diana y fallo del criterio de valoración.
Qué debe conservarse para trabajos futuros
La conclusión general más sólida es una exigencia de especificidad: indicar la definición celular, el tejido, la escala temporal, la intervención y el resultado antes de interpretar un cambio de carga. Los estudios citados en ratones proporcionan puntos de partida causales, pero la traslación a humanos requeriría evidencia independiente sobre selectividad, exposición, beneficio y daño. Una próxima generación útil de estudios conectaría mapas espaciales de estados con mediciones funcionales longitudinales, en lugar de tratar paneles de marcadores más amplios como sustitutos de los mecanismos. Las ecuaciones adjuntas exponen supuestos que pueden cuestionarse. Sus curvas numéricas son cálculos ilustrativos originales en unidades arbitrarias y no contienen observaciones experimentales reconstruidas ni inventadas.
El momento de intervención distingue la eliminación de la prevención
Una carga medida menor puede surgir porque menos células entran en el estado, porque las células existentes lo abandonan o porque el ensayo cambia su clasificación. La ecuación simple de carga combina únicamente entrada y eliminación, por lo que no puede identificar estos mecanismos a partir de una sola medición final. Una comparación propuesta seguiría el mismo tejido durante una fase de inducción y otra de recuperación, utilizando múltiples marcadores de estado y un criterio de valoración funcional medido por separado. El momento de la intervención forma parte de la hipótesis: eliminar un estado persistente después de la reparación puede tener una consecuencia diferente de suprimir su aparición durante la reparación. La unidad pertinente sigue siendo un organismo o un sistema tisular tratado de forma independiente, no cada campo de imagen.
La selección puede hacer que un tejido más depurado parezca más sano
Una intervención selectiva puede eliminar las células más dañadas y modificar la distribución de las células supervivientes. Comparar entonces la expresión media únicamente entre las supervivientes condiciona el análisis a un resultado del tratamiento. La mejora aparente puede combinar un efecto de composición con un cambio dentro de las células supervivientes. Comunicar la función tisular total, los recuentos celulares y las distribuciones de estados junto con las mediciones intracelulares permitiría inspeccionar esa distinción. Un resultado negativo es informativo si se produjo depleción pero no mejoró el criterio de valoración funcional preespecificado: limita la afirmación de que la población seleccionada era suficiente para mantener la disfunción en esas condiciones. No establece que todos los estados senescentes sean prescindibles.
Un modelo analítico declarado
Cuatro ecuaciones, supuestos explícitos
(1) S es una carga de estado celular definida operacionalmente; I es la entrada por unidad de tiempo y k es una tasa de eliminación de primer orden.
(2) Para una carga inicial nula e I y k constantes y positivos; el equilibrio es I/k.
(3) Longitud de difusión-degradación en una idealización homogénea; la unión en el tejido y la geometría pueden invalidarla.
(4) Respuesta neta ilustrativa que combina reparación saturante y coste de la carga; los coeficientes no son estimaciones clínicas.
Ejemplos construidos · Datos reproducibles
Inspeccionar el argumento cuantitativo
Estas curvas se calculan a partir de los modelos declarados. No son observaciones de los estudios citados. Cada figura incluye sus datos numéricos y su versión vectorial.


¿Qué evidencia responde a qué pregunta?
| Evidencia o decisión de diseño | Qué identifica | Qué sigue sin resolverse |
|---|---|---|
| Marcador de estado | Actuación sobre la diana definida operacionalmente | Identidad celular y poblaciones fuera de la diana |
| Carga longitudinal | Dinámica de entrada y eliminación | Vías de recambio no medidas |
| Señalización espacial | Exposición potencial de los receptores | Causalidad real del mediador |
| Criterio de valoración funcional de reparación | Consecuencia tisular | Extrapolación a otros tejidos |
| Estrategias de eliminación distintas | Evidencia convergente de intervenciones | Mecanismos compartidos fuera de la diana |
Un protocolo de validación propuesto
Este es un diseño de evaluación propuesto. Para este artículo no se llevó a cabo ningún nuevo experimento biológico, ensayo clínico ni experimento físico.
- Definir el tejido y el marcador operacional del estado celular.
- Especificar la fase de reparación antes de asignar los grupos.
- Aleatorizar a nivel del organismo para las intervenciones sistémicas.
- Medir la carga absoluta y relativa independientemente de la función.
- Seguir la recuperación y el daño tardío, no solo la respuesta inmediata.
- Utilizar una intervención con un mecanismo diferente para explorar explicaciones alternativas.
- Conservar los identificadores del muestreo anidado y la evaluación enmascarada de los resultados.
- Publicar los coeficientes del modelo, la incertidumbre y las exclusiones.
Qué establecen las fuentes primarias
Darren J. Baker, Tobias Wijshake, Tamar Tchkonia et al. · 2011 [1]
Contribución. La eliminación genética modificó fenotipos asociados a la edad en un modelo murino progeroide.
Límite. No constituye una afirmación de tratamiento general para humanos.
Localización en la fuente. Resumen y alcance experimental
Darren J. Baker, Bennett G. Childs, Matej Durik et al. · 2016 [2]
Contribución. La eliminación de células positivas para p16 de aparición natural afectó a la duración de la vida saludable en ratones.
Límite. El alcance del marcador y del organismo sigue siendo relevante.
Localización en la fuente. Resumen y alcance experimental
Marco Demaria, Naoko Ohtani, Sameh A. Youssef et al. · 2014 [3]
Contribución. La señalización de las células senescentes contribuyó a la reparación de heridas en ratones.
Límite. Un beneficio reparador transitorio no implica que la persistencia crónica sea beneficiosa.
Localización en la fuente. Resumen y análisis de PDGF-AA
Límites de este análisis
- Las intervenciones causales citadas se realizaron en ratones.
- Las poblaciones positivas para marcadores no son intercambiables.
- El modelo de balance omite la retroalimentación y la heterogeneidad espacial.
- La curva de respuesta es ilustrativa y no puede identificar un óptimo terapéutico.
Un análisis narrativo focalizado en los estudios primarios mencionados, no una búsqueda sistemática de la literatura ni una afirmación de cobertura exhaustiva hasta 2026.
Preguntas que cambiarían la conclusión
- ¿Qué poblaciones espaciales determinan la reparación frente a la disfunción persistente?
- ¿Pueden identificarse por separado la entrada y la eliminación a partir de observaciones longitudinales?
- ¿Qué criterios de valoración funcionales predicen daño tardío tras la actuación sobre la diana?
Referencias
- Darren J. Baker, Tobias Wijshake, Tamar Tchkonia et al.. Clearance of p16Ink4a-positive senescent cells delays ageing-associated disorders. Nature (2011). 10.1038/nature10600.
- Darren J. Baker, Bennett G. Childs, Matej Durik et al.. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature (2016). 10.1038/nature16932.
- Marco Demaria, Naoko Ohtani, Sameh A. Youssef et al.. An Essential Role for Senescent Cells in Optimal Wound Healing through Secretion of PDGF-AA. Developmental Cell (2014). 10.1016/j.devcel.2014.11.012.
Identidad bibliográfica verificada con Crossref. La interpretación utiliza registros primarios accesibles, resúmenes y textos seleccionados; la cobertura de los textos completos y los métodos suplementarios no es exhaustiva.
Autoría y procedencia
Revisión de investigación basada en fuentes y análisis matemático original escritos por Codex (IA). Los experimentos citados pertenecen a los equipos de investigación citados.
Portada conceptual creada con la herramienta integrada ImageGen. Las figuras cuantitativas son análisis explícitamente construidos, con código y datos numéricos; no son mediciones de los artículos citados.
Este borrador local no tiene constancia de revisión por pares independiente ni de aceptación en una revista.