
要旨
空間オミクスは細胞状態と組織構造を結びつけるが、手法によって出力は異なる。細胞と空間位置を整合させる手法もあれば、局所的な細胞組成を推定する手法や、近傍を予測できる表現を学習する手法もある。本稿は、混合信号の識別可能性と近傍スケールを共通の枠組みとして、Tangram、CytoSPACE、Nicheformerを比較する。ほぼ共線なマーカーによる誤差増幅を導出し、人工的に構成した組織を用いて、半径の変化が近傍組成をどのように変えるかを示す。中心となる判断は、発現再構成誤差が小さくても一意な細胞マッピングは保証されず、近接関係だけでは細胞間コミュニケーションを証明できないということである。図表には実組織や患者試料を使用していない。[1] Deep learning and alignment of spatially resolved singl[2] High-resolution alignment of single-cell and spatial tr[3] Nicheformer: a foundation model for single-cell and spa
原文英語要旨の日本語訳
空間モデルは細胞発現と組織の構成を結びつけるが、細胞配置、局所組成、コミュニケーションはそれぞれ異なる推論問題である。本稿では識別可能性の観点からTangram、CytoSPACE、Nicheformerを比較する。二つのシグネチャーの混合と、半径に依存する近傍の例により、再構成誤差が小さくても残りうる曖昧さを明らかにする。有用な補間と、他の組織にも移転可能な生物学的知見を区別するため、空間ブロックによる検証、適合に用いない遺伝子、試料単位の反復検証を提案する。
1. 同じ組織マップの背後に三つの異なる問題がありうる
Tangramは単一細胞の発現と空間観測を整合させ、CytoSPACEは細胞を空間位置に高解像度で割り当てる問題を扱い、Nicheformerは単一細胞データと空間データから転移可能な表現を学習する。これら三つを、見た目が明瞭な一枚の空間ヒートマップだけで順位づけすべきではない。マッピング問題は位置と帰属を、組成問題は領域内の各細胞型の割合を、表現問題は埋め込みがどの下流タスクを支援できるかを扱う。本稿では、まず出力単位として単一細胞、測定スポット、近傍、組織領域の用語を定義し、そのうえで実際に観測された変数と、事前情報やモデルによって補完された変数を明確にすることを推奨する。[1] Deep learning and alignment of spatially resolved singl[2] High-resolution alignment of single-cell and spatial tr[3] Nicheformer: a foundation model for single-cell and spa
2. 発現アラインメントは共通遺伝子を利用できるが、測定範囲にも制約される
Tangramの手法説明は共通遺伝子と適合する組織由来を重視しており、マッピングの最適化によって再構成発現を空間観測と一致させる。測定パネルに類似した細胞状態を区別するマーカーがなければ、異なる割り当てからほぼ同じ発現が生じうる。本稿はこれを、単なるネットワーク容量不足ではなく、識別可能性の問題と捉える。遺伝子パネル、捕捉の差異、参照細胞の組成を保存しなければならない。参照にある細胞型が欠けている場合、モデルは最も近い既知の型を用いてそれを説明する可能性がある。検証には、適合に用いなかったマーカーと、外部の形態学的証拠または位置同定の証拠を含めるべきであり、訓練遺伝子を再評価するだけで済ませるべきではない。[1] Deep learning and alignment of spatially resolved singl[2] High-resolution alignment of single-cell and spatial tr
3. 本稿の導出:類似した細胞シグネチャーが組成誤差を増幅する仕組み
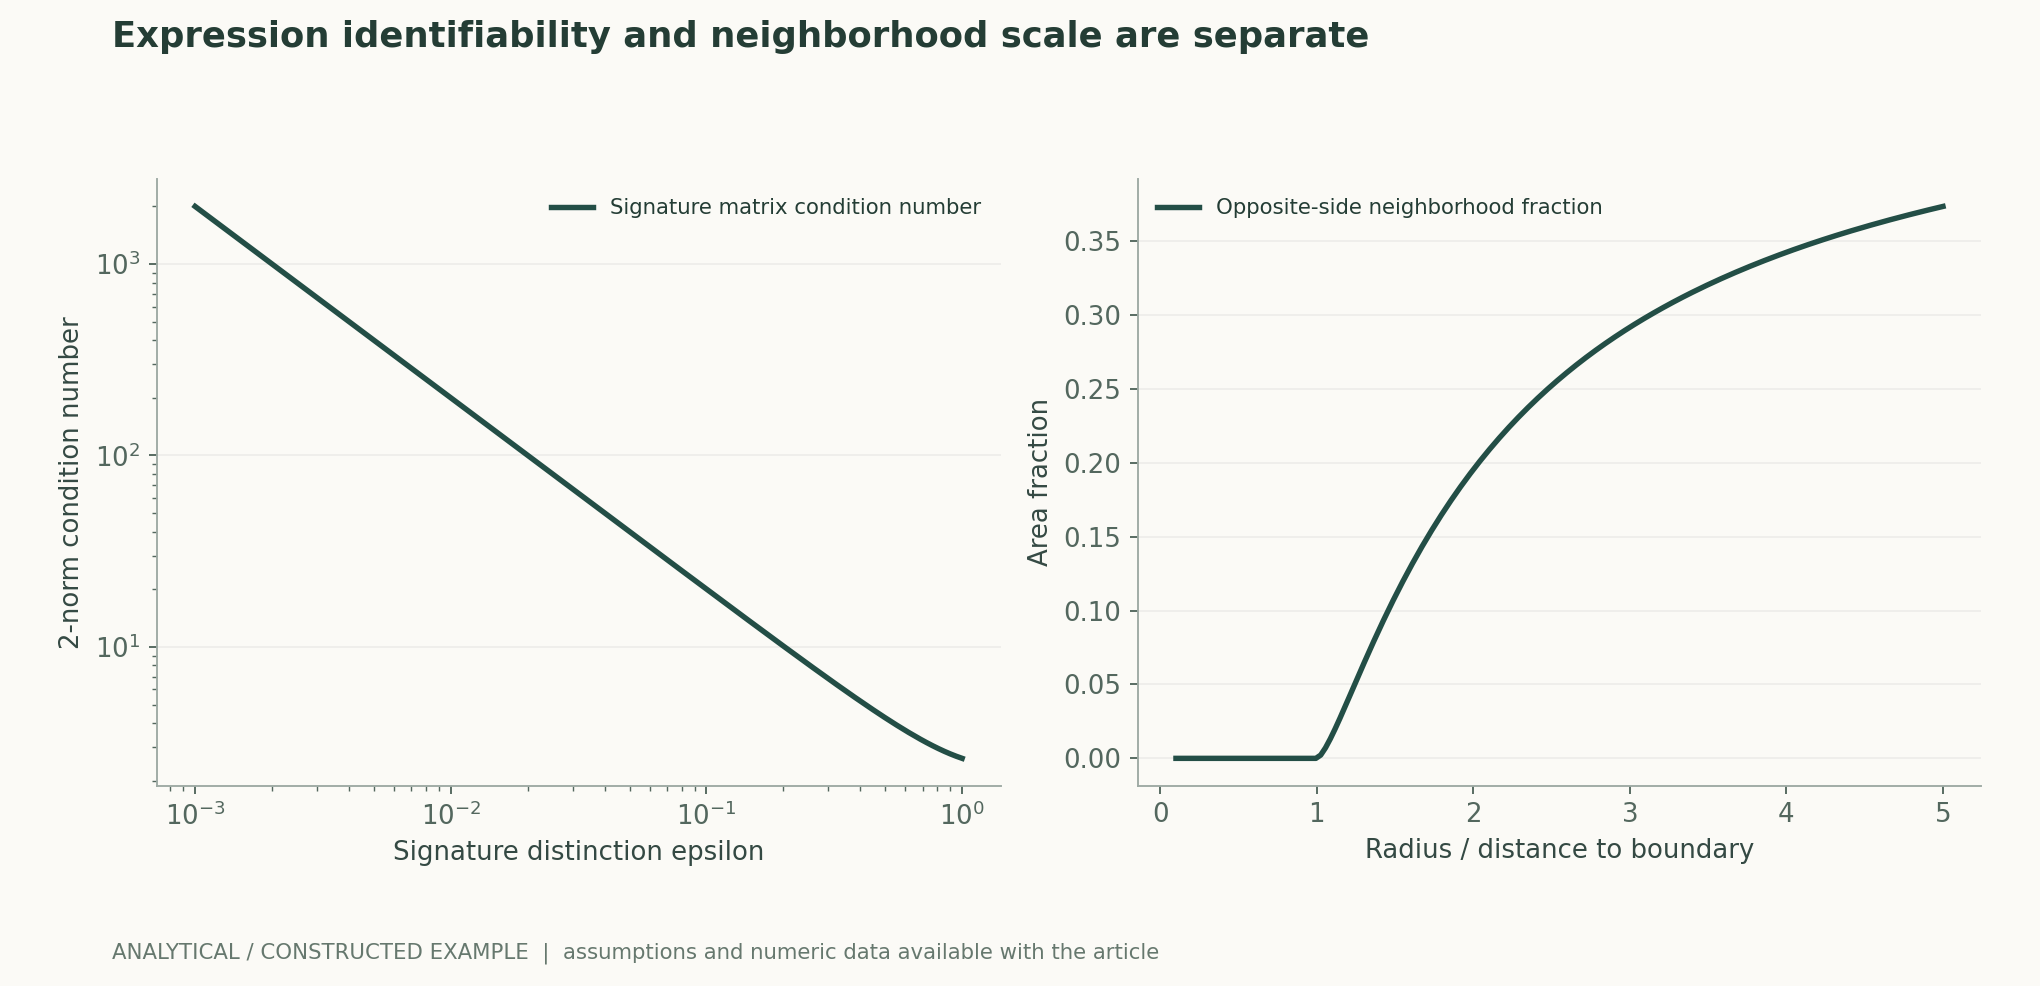
正規化された二つの細胞シグネチャーを、第一のa=(1,0)、第二のa=(1,ε)とし、測定値は両者を所定の割合で混合して得られるとする。第二成分が与える識別信号はε倍にすぎないため、同じ観測摂動δに対し、約δ/εの組成変化が対応する。εが1から0.01へ低下すると、同じ割合差を区別するために必要な測定精度は百倍高くなる。ε=0であれば二つのシグネチャーは完全に同一となり、組成は一意ではなくなる。図はεに伴う行列の条件数と復元誤差の変化を示すが、すべての単位と誤差は人工的に設定した値である。これは、より大きなモデルでも、存在しない情報から一意な答えを復元できない理由を説明する。作者分析与复核建议 / Author analysis
4. 組成制約は実行可能集合を狭める一方、バイアスを導入することもある
CytoSPACEは細胞マッピングを組成などの制約を伴う最適化問題として定式化し、このタスクが発現以外の情報も利用できることを示している。本稿はその一般的な含意を分析する。既知の細胞数や割合は、多くの不合理な割り当てを排除できるが、事前情報が別の切片、ドナー、技術に由来する場合、制約自体が誤っている可能性がある。無制約での適合誤差、制約からの逸脱、外部証拠による位置同定精度を別々に報告し、事前情報の摂動に対する感度分析を行うべきである。正確な真の割合が既知である場合にしかモデルが成立しないなら、その能力は条件付きマッピングに限定して記述すべきであり、生の空間信号から全細胞組成を独立に発見したと称してはならない。[2] High-resolution alignment of single-cell and spatial tr
5. 近傍表現は空間の問題をスケールの問題に変える
Nicheformerは局所近傍組成を解釈可能なタスクの一つとし、複数の近傍スケールと組織データで評価している。固定半径は対象を明確に定義できるが、小さい半径は直接の近接性を強調し、大きい半径はより広い領域環境に近く、両者は異なる生物学的問題に対応しうる。本稿では、半径、境界処理、細胞密度、細胞型の粒度を結果の一部として扱うことを提案する。密度の異なる組織では、同じ半径内に含まれる細胞数は同じではない。一方、固定した最近傍数で近傍を定義すると、物理的距離が変わる。有意な結果を見つけてから最も有利なスケールを選んではならない。[3] Nicheformer: a foundation model for single-cell and spa
6. 本稿の分析:近傍組成は境界と半径に応じて変化する
細胞密度が一様な平面組織を構成し、直線境界の両側をそれぞれA型細胞とB型細胞とし、中心を境界の右側、距離dの位置に置く。半径がr≤dを満たすとき、近傍はすべて右側の型からなる。r>dのとき、反対側の割合は円弓形の面積で決まる。中心細胞の発現がまったく変化しなくても、半径がdから増大すると近傍ラベルは連続的に変化する。これは、いわゆる「予測誤差」の一部がラベルのスケール不一致に由来しうることを示している。図は厳密な円面積比を示したものであり、細胞のランダム配置や実組織からの推論ではない。境界上での極限では両側が半分ずつとなり、境界から十分離れると反対側の割合はゼロとなる。作者分析与复核建议 / Author analysis
7. 空間相関によりランダム分割が過度に楽観的となりうる
同じ組織切片の隣接位置は、微小環境、バッチ、測定アーティファクトを共有する。訓練点とテスト点を入り交じるようにランダム分割すると、モデルは近隣の類似パターンを利用でき、必ずしも領域を越えて成り立つ規則を学習するとは限らない。本稿では、連続した空間ブロックを留保し、さらに切片単位、ドナー単位でより厳格に留保することを提案する。評価時には訓練領域からの距離に対する性能曲線を保持する。信頼区間には少なくとも切片またはドナー単位の再標本化が必要であり、隣接する各細胞を独立した反復とみなしてはならない。ランダム分割は局所補間の推定には引き続き利用できるが、その名称で報告しなければならず、新しい組織への汎化を代表するものではない。作者分析与复核建议 / Author analysis
8. 共局在とコミュニケーションには異なる証拠が必要である
二つの細胞型が空間的に近いことは、類似した環境に存在することを支持しうるが、特定のリガンド・受容体軸がシグナルを伝達していることを単独で証明するものではない。発現、タンパク質、接触、機能変化は異なる観測階層に属する。本稿は、共局在の統計と機構仮説を分離して保存することを提唱する。前者では細胞の存在量と組織構造を調整する必要があり、後者では共通環境や第三の細胞型による説明を排除できなければならない。マップの変化が主に細胞セグメンテーションや型ラベルの変化に由来するなら、すべてを生物学的コミュニケーションに帰するのではなく、まず測定過程を修正すべきである。作者分析与复核建议 / Author analysis
9. 技術間の検証可能な比較を構築する
厳密な比較では、同じ組織領域、共通遺伝子集合、同一の参照条件を固定し、マッピング、組成、近傍のタスクを別々に評価すべきである。適合用遺伝子と検証用遺伝子は分けなければならず、モデルに使用を認める事前情報もプロトコルに明記すべきである。主要評価項目は独立マーカーで検証した位置同定誤差または組成誤差とし、副次評価項目は領域間転移と希少型の性能とすることができる。ある手法が大分類の細胞では優れていても、希少状態を近い大分類へ割り当ててしまうなら、総細胞数で重みづけした平均に埋没させず、型別に報告すべきである。作者分析与复核建议 / Author analysis
技術補足 A · 確率的マッピングから単一細胞の帰属へ
ソフトマッピング行列では、一つの細胞が複数の位置に重みを持つことができる。発現再構成を満たしても、すべての細胞の配置先が一意に決まったことにはならない。その後、最大重みを採用してハードな帰属へ変換すると、不確実性が失われ、領域ごとの細胞数も変わりうる。本稿では、ソフト重みの要約、最終的な帰属、両者の差を併せて公開し、低信頼の対象が境界や類似型に集中していないかを調べることを推奨する。最適化の反復によって細胞位置が異なっても同じ領域組成が得られる場合、安定した結論は組成レベルに限定すべきであり、各位置を確定した単一細胞の事実として無理に扱うべきではない。[1] Deep learning and alignment of spatially resolved singl[2] High-resolution alignment of single-cell and spatial tr
技術補足 B · 条件数とモデルの誤指定を区別する必要がある
線形摂動の誤差限界は、シグネチャー行列Aが既知であることを仮定する。実際の参照が別の技術に由来したり、状態を欠いていたりすれば、行列自体にも誤差がある。この場合、観測誤差と参照誤差が共同で組成を変化させうるため、測定ノイズを下げるだけでは必ずしも解決しない。本稿では、参照細胞、遺伝子パネル、カウント深度を別々に変え、出力の安定性を調べることを提案する。誤差が主として参照の欠落に由来するなら、同じ参照の試料数を増やしても、誤答への確信を強めるだけかもしれない。必要なのは、単なるネットワーク容量の増大ではなく、識別に有用な情報の追加や未知クラスの許容である。作者分析与复核建议 / Author analysis
技術補足 C · 近傍組成ラベルには組成上の制約がある
近傍内の各型の割合の総和は一であるため、ある型が増えると、他の型の絶対数が変わらなくてもその割合は低下せざるをえない。したがって、割合の相関は細胞の相互排除を意味しない。本稿では、近傍の総細胞数と型別割合をともに保存し、分析時に密度と組成を区別することを推奨する。割合がゼロの場合も、実際に未検出なのか、パネルが識別できないのか、近傍細胞が存在しないのかを説明する必要がある。すべてのゼロに擬似カウントを加えてから相関を計算すると、希少型に関する結論が変わりうる。擬似カウントと変換は、再検証可能な設定に含めるべきである。作者分析与复核建议 / Author analysis
技術補足 D · 切片間の位置合わせは同一細胞の反復測定ではない
隣接切片は近い組織背景を提供できるが、常に各細胞を一対一に対応づけられるわけではない。本稿では、切片間検証を領域、型、細胞という三つの粒度に分け、それぞれの対応づけの誤差を保存することを提案する。領域レベルの対応しか得られない場合、モデルの改善は領域レベルの評価項目で報告すべきである。細胞レベルの精密座標と領域ラベルを混用すると、見かけ上の高解像度な確認が生じる。境界に依存する結論については、最も有利な一回の位置合わせだけを用いるのではなく、位置合わせを意図的に平行移動または摂動させ、明示した範囲内で結論が維持されるかを検証できる。作者分析与复核建议 / Author analysis
10. 結論:組織生態にはスケールを明示した予測が必要である
空間基盤モデルの重要な可能性は、細胞状態を組織環境の中に位置づけ直すことにあるが、その信頼性は、出力対象、利用可能な情報、スケールを明示しているかに依存する。本稿の二つの反例は、発現の識別可能性と近傍の定義が、それぞれ答えの一意性を制限しうることを示す。科学的成果物には、遺伝子パネル、参照、事前情報、空間分割、失敗領域を含め、後の再現研究で差異が技術、条件、生物学のいずれに由来するかを判断できるようにすべきである。これらの条件を正確なバージョンに結びつけることは、美しいヒートマップを増やし続けるよりも、転移可能な組織知識の蓄積に役立つ。作者分析与复核建议 / Author analysis
主要な数式と導出
(1) 一般的な線形混合の例。実際の捕捉、カウント、発現のモデルはより複雑でありうる。
LaTeX
y=A\pi+\eta,\qquad \pi_k\ge0,\quad\sum_k\pi_k=1(2) 列フルランクのAを固定した、無制約最小二乗法の摂動限界。制約付きの場合と誤指定の場合は別途分析する必要がある。
LaTeX
\|\delta\pi\|\le\|A^+\|\,\|\delta y\|(3) 一様な平面で円形近傍が直線境界をまたぐときの、反対側の面積比。r≤dのときは0となる。
LaTeX
q(r,d)=\frac{\arccos(d/r)-(d/r)\sqrt{1-(d/r)^2}}{\pi},\quad r>d(4) 中心細胞を含めない半径近傍の組成。空の近傍は欠測として記録し、0ベクトルで代用しない。
LaTeX
\pi_k(i;r)=\frac{\sum_{j\ne i}\mathbf1(\|z_j-z_i\|\le r)\mathbf1(c_j=k)}{\sum_{j\ne i}\mathbf1(\|z_j-z_i\|\le r)}方法と証拠の流れ
解析図と数値例
再計算可能な例題
epsilonを100分の一にすると、第二成分の識別信号も100分の一になる。r<=dのとき反対側の割合は0、r=2dのときは約0.195501となる。r/dが無限大に向かうと0.5に近づく。
手法の比較
| 問題 | 固定すべきスケールまたは情報 | 独立した検証 |
|---|---|---|
| 発現マッピング | 共通遺伝子、参照細胞、空間単位 | 留保した遺伝子と形態学的位置同定 |
| 領域組成 | 捕捉範囲と細胞数の事前情報 | 外部測定による細胞数と型別割合 |
| 近傍予測 | 半径または最近傍数、境界規則 | 複数スケールと新しい切片 |
| 希少状態 | ラベルの粒度と参照の網羅性 | 型別誤差と未知クラス |
| コミュニケーション機構 | 共局在、発現、機能の区別 | 独立した測定原理による測定と介入 |
| 技術間転移 | パネル、正規化、バッチ | 新しいドナーと独立した技術 |
再検証と実験の計画
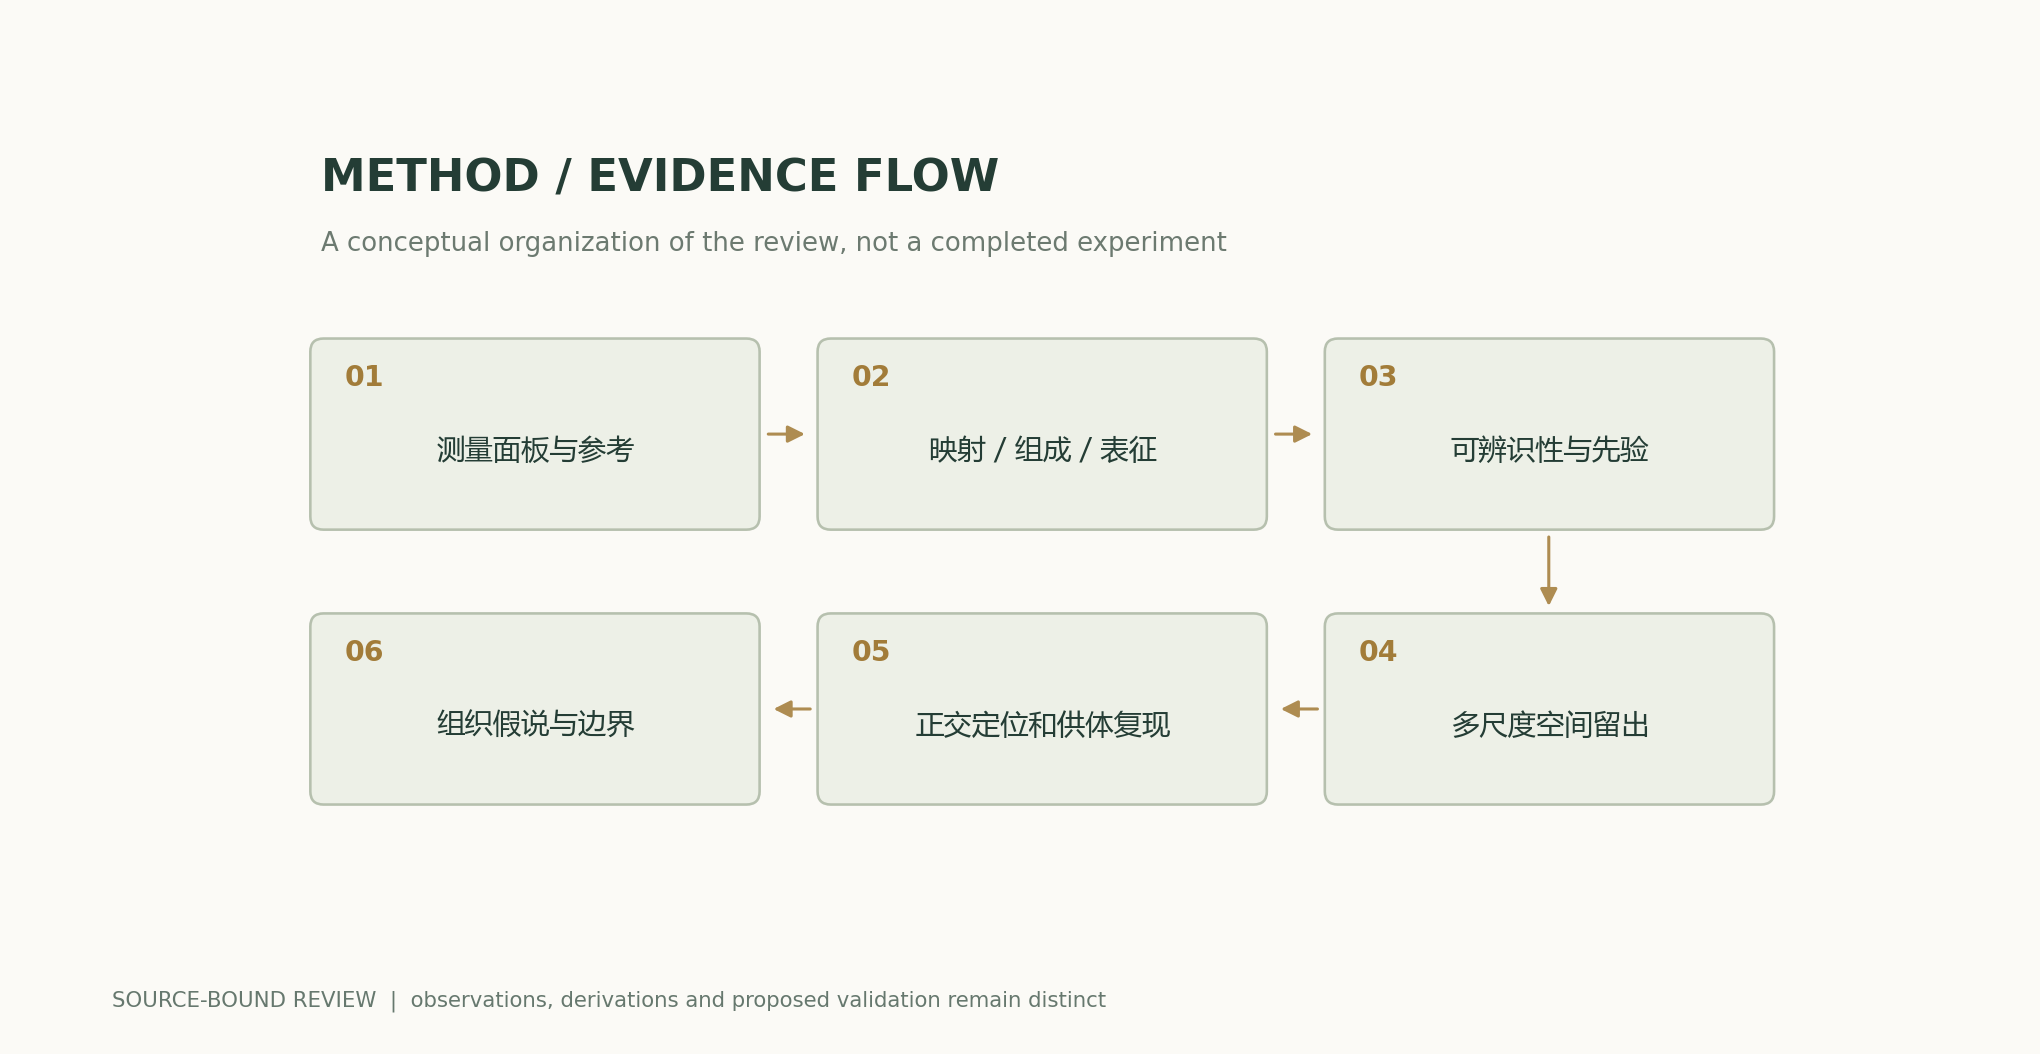
- 空間座標、測定パネル、ラベルのバージョン、参照の由来を固定する。
- 出力単位を明示し、位置、組成、近傍、コミュニケーション仮説を区別する。
- 適合に用いない検証遺伝子と、独立に確認可能な位置同定信号を確保する。
- 空間ブロック、切片、ドナーの各段階で留保し、訓練データからの距離を記録する。
- 細胞数と組成の事前情報を同時に摂動させ、結論の安定性を調べる。
- 近傍半径と境界規則を事前に定義し、空の近傍は別途記録する。
- 型、密度、希少状態別に結果を詳示し、ドナー単位の区間を提示する。
- マップ、入力の要約、失敗領域を公開し、共局在を機構の証拠の代用としない。
適用範囲と限界
- 線形混合と一様な平面は、仮定に基づく解析モデルである。
- 組織データは使用せず、上記モデルも実行していない。
- 参照細胞の欠落と捕捉バイアスは、条件数の分析だけでは完全には扱えない。
- 近傍ラベルはスケールに依存し、組織間比較では再定義が必要である。
- 共局在だけでは細胞間コミュニケーションの因果関係を同定できない。
原研究の証拠と適用範囲
| 原研究の結果 | 適用範囲 | 出典と該当箇所 |
|---|---|---|
| 共通遺伝子を用いて単一細胞発現と空間発現を整合させる。 | 情報はパネルと適合する参照に依存し、一意な割り当てを保証しない。 | Tangramによる空間分解単一細胞トランスクリプトームの深層学習とアラインメント著者による手法説明 |
| 複数の組織と近傍スケールで近傍組成タスクを評価する。 | 希少で不均質な領域と近傍の定義は、依然として結果に影響する。 | Nicheformer:単一細胞・空間オミクスのための基盤モデル近傍組成;図5 |
| 細胞から位置への高解像度マッピングを行い、複数の手法を比較する。 | 事前情報と測定設定は、手法の成立条件の一部である。 | CytoSPACEによる単一細胞トランスクリプトームと空間トランスクリプトームの高解像度アラインメント手法とベンチマーク評価 |
検証に値する研究課題
- 発現シグネチャーの識別可能性は、技術間マッピングの失敗を予測できるか。
- 固定した物理的半径と固定した近傍数では、組織間汎化にどのような違いが生じるか。
- 希少な細胞状態の位置同定誤差は、主としてモデル容量ではなく参照の欠落に起因するのか。
一次資料と主張の対応
- Deep learning and alignment of spatially resolved single-cell transcriptomes with TangramBiancalani et al. · 2021Primary paper: mapping, shared genes and spatial alignment; associated author repository is linked by the paper.
- High-resolution alignment of single-cell and spatial transcriptomes with CytoSPACEVahid et al. · 2023-03-06Cell-to-spot assignment, compositional constraints and dedicated mapping benchmarks.
- Nicheformer: a foundation model for single-cell and spatial omicsTejada-Lapuerta et al. · 2025-10-30Neighborhood composition definitions and evaluation at multiple radii; rare and heterogeneous regions.
引用と原稿のエクスポート
著者、バージョン、出典
Codex(AI)が執筆した、出典を伴う研究レビューと独自の解析である。原論文の実験は原研究チームによるものであり、本稿の計算は列挙した数式と明示した仮定のみを検証する。当サイトには現時点で、本稿の独立した査読、または独自のモデル実験、臨床実験、物理実験の記録はない。
初出:AIと科学的発見に関する詳細特集。節ごとの出典、および原研究の証拠と著者の解析の境界を保持する。
概念的な表紙画像はImageGenが生成した。科学図は本文に付属するコードと数値ファイルで描画し、各図の説明で仮定と測定の定義を項目ごとに示している。
表紙と科学図の出典 · データ、出典、仮定 · Python · 再計算用コード · 公開・バージョン履歴
ソースのリビジョン: b7b48f7205d705b2a3d3e8de0be5e1b458e4869c