
Resumen
Los condensados celulares plantean una posibilidad sorprendente: la química podría organizarse mediante interacciones moleculares colectivas en lugar de una membrana circundante. Sin embargo, la aparición de un compartimento redondo y dinámico no identifica por sí sola el mecanismo que lo formó ni la función que desempeña. Esta revisión examina tres enfoques experimentales de la biología de los condensados y desarrolla un marco cuantitativo para separar coexistencia, transporte, reacción e intervención causal. Una construcción basada en el balance de masa muestra cómo la amortiguación de la concentración puede coexistir con grandes cambios en el volumen del compartimento, mientras que un modelo de recuperación demuestra por qué una única escala temporal de fluorescencia no puede determinar de forma unívoca el estado material. El programa de investigación resultante se centra en mediciones que distingan explicaciones rivales, entre ellas la concentración absoluta, las perturbaciones reversibles y los controles que preservan la función.
Una explicación física debe formular predicciones arriesgadas
Una célula contiene muchas estructuras brillantes, pero el brillo es una observación, no un mecanismo. Explicar un compartimento mediante separación de fases equivale a afirmar que una mezcla puede reducir su energía libre adoptando estados de composición distintos. Esta afirmación debería predecir cómo responden la concentración circundante, el volumen condensado y el intercambio cuando cambia la cantidad total de material. También debería especificar dónde deja de ser válida la aproximación de equilibrio. Una célula activa sintetiza, modifica, transporta y degrada continuamente sus componentes. Por tanto, la tarea central es identificar un modelo físico útil en una escala temporal declarada y después poner a prueba consecuencias que no se derivarían de un modelo rival de unión a un andamiaje fijo. Una fotografía de una esfera no puede hacer esa distinción.
Tres puntos de apoyo experimentales
Brangwynne y sus colaboradores observaron un comportamiento similar al de un líquido y una disolución y condensación reguladas espacialmente en los gránulos P de la línea germinal. Molliex y sus colaboradores relacionaron las interacciones de dominios de baja complejidad, la formación de gotas y el aumento de la fibrilización en un sistema de proteínas de unión a ARN. Shin y sus colaboradores introdujeron optoDroplets controladas por luz, que permiten perturbar el ensamblaje en el espacio y en el tiempo. Estos estudios exploran distintos eslabones de una cadena explicativa: organización biológica, interacción molecular y ensamblaje controlable. Ninguno permite inferir que toda estructura puntiforme sea un líquido, que todo compartimento líquido sea funcional o que una respuesta optogenética diseñada reproduzca un sistema endógeno sin modificar. Su valor aquí es metodológico: sugieren observables distintos que pueden combinarse en una prueba causal más sólida. [1], [2], [3]
El balance de concentraciones
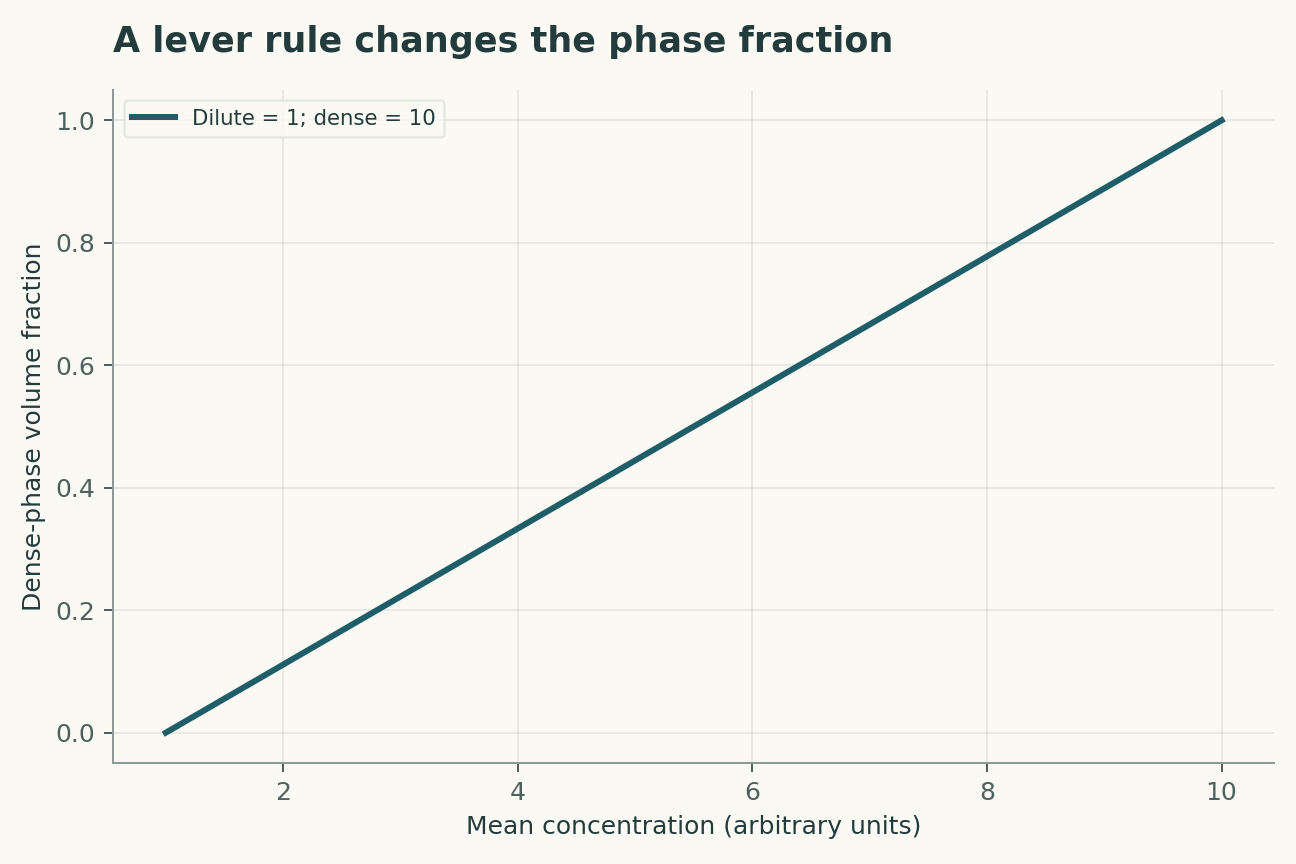
Consideremos una mezcla ideal de dos fases cuya concentración diluida es una unidad arbitraria y cuya concentración densa es diez. Si la concentración total es tres, la conservación exige una fracción volumétrica de fase densa de dos novenos. Elevar el total a cinco aumenta esa fracción a cuatro novenos, mientras ambas concentraciones de fase permanecen invariables en esta idealización. Por tanto, un detector centrado únicamente en la fase diluida podría registrar un cambio casi nulo aunque el volumen del compartimento se duplique. A la inversa, un detector que registre la fluorescencia integrada de las gotas mostraría un gran cambio sin que cambiara la concentración de la fase densa. Ninguna medición es incorrecta. La contradicción aparente surge de comparar concentración, cantidad y volumen como si fueran la misma variable. La calibración absoluta permite establecer experimentalmente la distinción.
Por qué la regla de la palanca es solo un punto de partida
El cálculo de dos fases supone un sistema cerrado y bien mezclado en coexistencia, interfaces despreciables y una única coordenada efectiva de concentración. Un condensado real contiene muchas especies moleculares, por lo que modificar una concentración puede modificar las composiciones de coexistencia de las demás. Una proteína que se distribuye en las gotas puede ser un cliente pasivo, un andamiaje que desplaza el límite de fase o un regulador de las interacciones de otro componente. La concentración diluida observada no tiene por qué permanecer constante frente a todas las perturbaciones. Esto no refuta automáticamente la separación de fases; cuestiona la reducción elegida. Una extensión útil mide al menos dos coordenadas independientes de concentración y registra si cambia la línea de unión inferida. El aumento de la complejidad del modelo debería responder a un fallo observable del modelo más sencillo, en vez de servir de escapatoria ante toda predicción fallida.
El intercambio no equivale a la fluidez interna
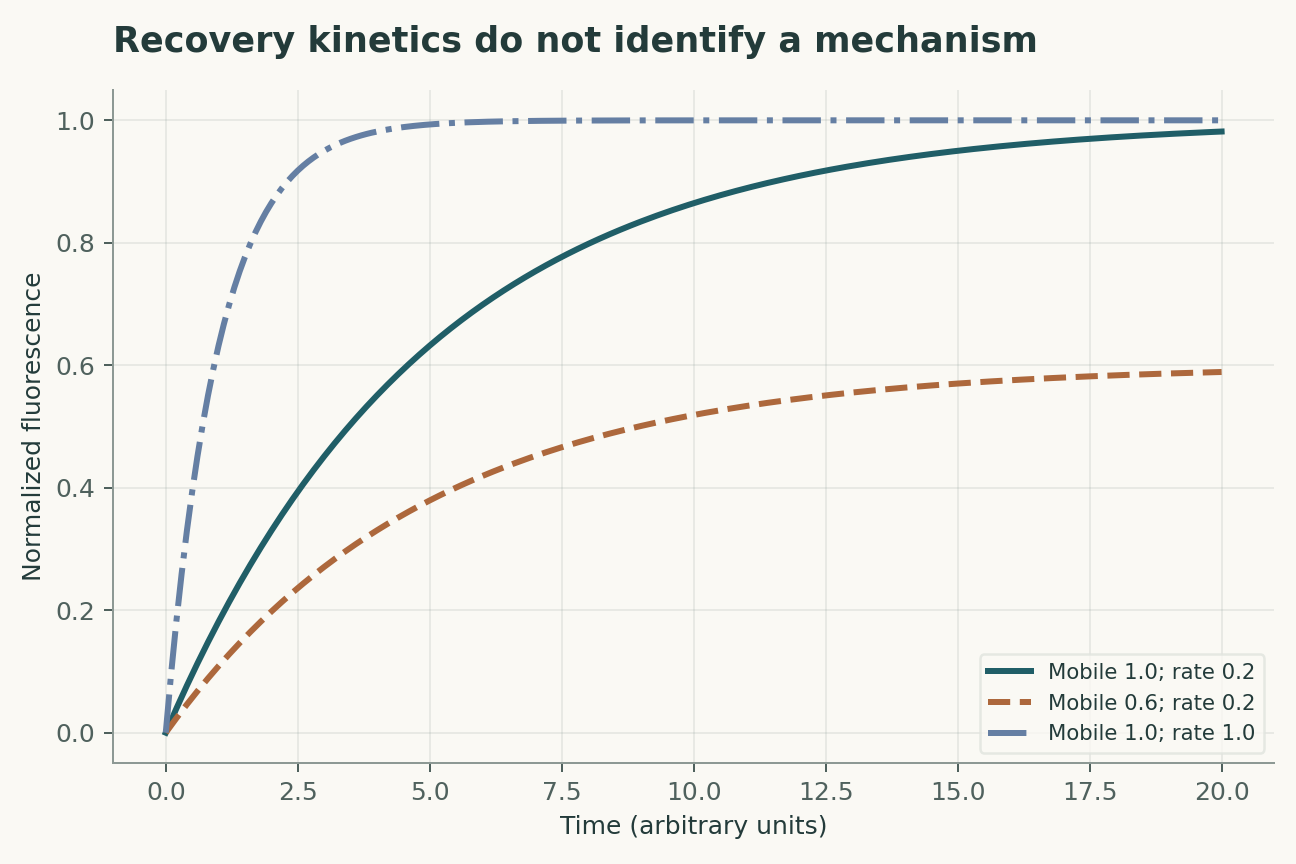
La recuperación de fluorescencia tras fotoblanqueo suele tratarse como una huella del estado material. En un modelo mínimo de intercambio, la fracción recuperada se aproxima exponencialmente a una meseta, con una amplitud que describe la población que intercambia y una tasa que describe la reposición efectiva. Curvas de recuperación idénticas pueden surgir de distintas combinaciones de difusión, unión reversible y transporte a través de una interfaz. Fotoblanquear una gota entera evalúa principalmente el intercambio con su entorno; fotoblanquear una pequeña región interna también evalúa la redistribución en su interior. Por tanto, la geometría del fotoblanqueo forma parte de la definición de la medición. Una recuperación rápida demuestra movilidad molecular en esa geometría, pero no identifica de forma unívoca una fase termodinámica ni excluye un andamiaje que se renueva dinámicamente. Una segunda geometría suele ser más informativa que una estimación mucho más precisa de la primera constante de recuperación.
Una ambigüedad cuantitativa en una curva familiar
Supongamos que un experimento produce una fracción de recuperación igual a uno menos una exponencial con un tiempo característico de diez segundos. Tanto un modelo de unión limitado por la reacción como un modelo de compartimento limitado por el intercambio pueden producir esa curva. Incluso una medición sin ruido no permite elegir entre ellos, porque ambos predicen el mismo observable. Se trata de no identificabilidad estructural, no de una falta de potencia estadística. Reduzcamos ahora a la mitad el radio del fotoblanqueo, manteniendo fija la composición. Una contribución controlada por difusión debería variar con el cuadrado de una longitud característica, mientras que una tasa ideal de disociación de primer orden no debería hacerlo. La intervención genera una diferencia entre las predicciones. La figura de análisis ilustra curvas de recuperación con distintas fracciones móviles y tasas, pero la discriminación propuesta depende de cómo respondan esos parámetros a un cambio geométrico controlado.
Las interfaces contienen información que los interiores ocultan
Para una gota esférica de radio r, la relación superficie-volumen es tres dividido por r. En consecuencia, las gotas pequeñas destinan una fracción mayor de su material a entornos interfaciales. Si una reacción se localiza en la interfaz, su tasa total no tiene por qué seguir el volumen condensado. Duplicar el radio multiplica el volumen por ocho, pero el área por cuatro. Por tanto, una comparación basada únicamente en la intensidad integrada representaría incorrectamente la relación de escala pertinente. Este sencillo argumento dimensional justifica medir distribuciones de tamaños, no solo el tamaño medio. También revela una limitación: una población de compartimentos irregulares, que interactúan o que humectan superficies no puede reducirse a esferas aisladas sin comprobar su geometría. El propósito de una ley de escala es exponer una dependencia comprobable, no disimular una morfología inconveniente.
Distinguir el enriquecimiento de la aceleración
Un sustrato puede estar muy enriquecido dentro de un compartimento y, aun así, reaccionar más lentamente en él. La enzima puede estar excluida, inhibida, saturada o atrapada en una orientación menos productiva. Los coeficientes de partición son cocientes de concentraciones en equilibrio; el flujo catalítico es una tasa fuera del equilibrio. Para relacionarlos se necesitan las concentraciones de todos los reactivos limitantes y una ley cinética válida en cada fase. En una reacción bimolecular no saturada, deliberadamente sencilla, el enriquecimiento de ambos reactivos multiplica la propensión local a reaccionar, pero la contribución total debe seguir ponderándose por el pequeño volumen ocupado por la fase densa. En cuanto aparece saturación o limitación por difusión, esa multiplicación deja de ser válida. Presentar conjuntamente el enriquecimiento local y el flujo de toda la célula evitaría confundir una imagen espacial atractiva con un mecanismo cinético.
Una intervención causal necesita una alternativa equiparable
Eliminar una región de baja complejidad puede suprimir simultáneamente las gotas y una función biológica. Ese resultado es compatible con un papel funcional de la condensación, pero la deleción también puede eliminar sitios de unión, señales de localización o modificaciones reguladoras. Un diseño más sólido busca variantes que alteren el ensamblaje colectivo preservando la interacción necesaria para la función propuesta. A la inversa, un rescate que restablezca la función sin recuperar la morfología original cuestionaría una explicación centrada en la morfología. Lograr esa separación es difícil y no debería prometerse mediante una estrategia genérica de mutación. Debe demostrarse con mediciones directas de interacción y una expresión comparable. La pregunta clave es si la intervención cambia la variable causal hipotética con suficiente selectividad como para atribuirle la respuesta funcional.
El tiempo crea un segundo diagrama de fases
Un ensamblaje que al principio intercambia rápidamente puede quedar detenido más adelante. Por tanto, un experimento que mide solo el primer minuto y otro que mide al día siguiente pueden describir estados materiales diferentes sin contradecirse. Un estudio útil registra la edad de cada ensamblaje y distingue las observaciones repetidas del mismo objeto de las de objetos independientes de distintas edades. La histéresis durante el ensamblaje y la disolución puede reflejar barreras de nucleación, reorganización lenta o química irreversible. Una interpretación de equilibrio necesita un argumento de separación de escalas temporales: la relajación debe ser rápida en comparación con el protocolo. Cuando esta condición no se cumple, el experimento debería presentar una trayectoria cinética en lugar de etiquetar cada umbral como un límite de coexistencia. Este cambio terminológico resulta científicamente productivo porque identifica qué tasas deben medirse a continuación.
Qué se debería pedir que predigan los modelos computacionales
Un modelo de secuencias entrenado para clasificar proteínas como asociadas a condensados puede aprender la localización, la abundancia o las prácticas de anotación en lugar de una propiedad termodinámica. Una predicción mecanística debería especificar su objetivo: la concentración de saturación en una solución definida, la partición en una mezcla, un tiempo de detención cinética o una respuesta celular. Estos objetivos requieren etiquetas de entrenamiento diferentes. Repartir secuencias similares entre entrenamiento y prueba también puede exagerar la capacidad de generalización. Una evaluación útil reserva familias de secuencias y condiciones experimentales completas, y después pregunta si los cambios predichos conservan su signo y su incertidumbre. Los fallos fuera del dominio deberían registrarse junto con las ordenaciones acertadas. La concordancia entre varios modelos entrenados con las mismas anotaciones no constituye evidencia física independiente, aunque puede ayudar a seleccionar un conjunto de hipótesis abordable experimentalmente.
Un programa de medición que puede fallar de manera constructiva
El siguiente experimento más informativo seguiría conjuntamente la concentración total, la concentración de la fase diluida, la de la fase densa, la geometría del compartimento y el flujo funcional durante una perturbación reversible. Si el balance de masa cierra, pero la concentración de la fase diluida varía, la reducción a dos componentes es inadecuada. Si la morfología cambia mientras el flujo permanece constante, la morfología no es el mediador limitante en esas condiciones. Si la recuperación cambia con la geometría del fotoblanqueo, pero no con una perturbación de la unión, el transporte merece mayor atención. Cada resultado reduce el espacio de explicaciones. Este enfoque sustituye una etiqueta universal por un modelo cuyo fracaso es interpretable. La biología de los condensados se fortalece cuando un resultado negativo indica qué eslabón de la cadena causal se rompió, en vez de limitarse a trasladar una estructura de una categoría descriptiva a otra.
Una perturbación debe separar el ensamblaje de la función
Una prueba causal útil compararía perturbaciones que cambien el volumen condensado preservando la abundancia de proteínas, los sitios de unión y el acceso al compartimento. Ese requisito es difícil de cumplir: los mismos rasgos de secuencia pueden controlar el comportamiento de fases y el reconocimiento molecular. Por tanto, la pérdida de actividad tras eliminar una región desordenada admite al menos dos interpretaciones. Una perturbación ortogonal, un rescate que restablezca el ensamblaje sin recuperar la secuencia original y un ensayo de unión fuera de las gotas ayudarían a distinguirlas. La variable de resultado debería medirse a lo largo del tiempo porque un transporte retrasado puede producir el mismo producto final con cinéticas distintas. La comparación propuesta se refiere al mecanismo, no a si un objeto parece líquido.
Identificabilidad de un coeficiente de partición aparente
Un cociente de fluorescencias solo se convierte en un cociente de concentraciones después de tener en cuenta el fondo, el seccionamiento óptico y la respuesta del fluoróforo. La saturación del detector puede comprimir la señal de la fase densa; un marcador de fondo excluido puede cambiar la señal aparente de la fase diluida. En una prueba de balance de masa, la abundancia total medida de forma independiente debería concordar con las concentraciones ponderadas por volumen. La falta de cierre cuestionaría primero el modelo de medición. Incluso un coeficiente de partición consistente no demuestra equilibrio: la unión y el transporte impulsados pueden mantener el enriquecimiento. Medir la respuesta a cambios controlados de concentración y la trayectoria de retorno tras invertirlos revelaría una histéresis que una sola imagen no puede resolver.
Un modelo analítico declarado
Cuatro ecuaciones, supuestos explícitos
(1) Regla de la palanca para una mezcla ideal cerrada de dos fases; válida únicamente entre las concentraciones de coexistencia.
(2) Modelo construido de recuperación con una sola tasa; la tasa ajustada no identifica un mecanismo microscópico único.
(3) La geometría esférica distingue las contribuciones interfaciales de las volumétricas.
(4) Flujo de reacción ponderado por volumen cuando cada fase tiene una tasa local bien definida.
Ejemplos construidos · Datos reproducibles
Examinar el argumento cuantitativo
Estas curvas se calculan a partir de los modelos declarados. No son observaciones de los estudios citados. Cada figura incluye sus datos numéricos y su versión vectorial.


¿Qué evidencia responde a cada pregunta?
| Evidencia o decisión de diseño | Qué identifica | Qué queda sin resolver |
|---|---|---|
| Concentraciones absolutas de las fases | Balance de masa y amortiguación de la concentración | Desplazamientos de la coexistencia en sistemas multicomponente |
| Recuperación de la gota completa | Intercambio con el entorno | Reorganización interna |
| Fotoblanqueo local con varios radios | Dependencia de la recuperación respecto a la longitud | Reacción y difusión acopladas |
| Perturbación equiparada del ensamblaje | Un posible mediador causal | Otras interacciones alteradas |
| Flujo funcional resuelto en el tiempo | Consecuencias cinéticas | Qué paso molecular limita el flujo |
Una propuesta de protocolo de validación
Este es un diseño de evaluación propuesto. Para este artículo no se realizó ningún experimento biológico nuevo, ensayo clínico ni experimento físico.
- Calibrar la concentración total y la específica de cada fase en la misma escala.
- Registrar la geometría del fotoblanqueo, la edad del objeto y los tiempos de adquisición.
- Predefinir modelos rivales de unión, transporte y coexistencia.
- Medir barridos reversibles de concentración y su histéresis.
- Comparar las tasas funcionales dependientes del tamaño con las predicciones basadas en el área y el volumen.
- Utilizar perturbaciones equiparadas que preserven las interacciones pertinentes cuando se haya demostrado dicha preservación.
- Publicar las decisiones de segmentación, la propagación de incertidumbres y los resultados negativos.
Qué establecen las fuentes primarias
Clifford P. Brangwynne, Christian R. Eckmann, David S. Courson et al. · 2009 [1]
Contribución. Los gránulos P mostraron un comportamiento similar al de un líquido y procesos regulados de disolución y condensación.
Ámbito de validez. El sistema de la línea germinal estudiado y las condiciones de obtención de imágenes.
Ubicación en la fuente. Resumen; observaciones principales
Amandine Molliex, Jamshid Temirov, Jihun Lee et al. · 2015 [2]
Contribución. Las interacciones de regiones de baja complejidad sustentaron las gotas y promovieron la fibrilización en el sistema proteico estudiado.
Ámbito de validez. Proteínas y condiciones experimentales específicas.
Ubicación en la fuente. Resumen; separación de fases y fibrilización
Yongdae Shin, Joel Berry, Nicole Pannucci et al. · 2017 [3]
Contribución. La activación por luz proporcionó control espacial y temporal sobre la formación de gotas diseñadas.
Ámbito de validez. Constructos optogenéticos diseñados.
Ubicación en la fuente. Resumen; plataforma optoDroplet
Límites de este análisis
- Las figuras son construcciones matemáticas, no nuevas mediciones de condensados.
- La regla de la palanca supone una reducción ideal a dos fases en un sistema cerrado.
- La recuperación monoexponencial no es un modelo unívoco del estado material.
- Los estudios seleccionados no demuestran que todas las estructuras puntiformes celulares compartan un único mecanismo.
Un análisis narrativo centrado en los estudios primarios citados, no una búsqueda bibliográfica sistemática ni una afirmación de cobertura exhaustiva hasta 2026.
Preguntas que cambiarían la conclusión
- ¿Qué cambios funcionales persisten ante perturbaciones que preservan la unión, pero alteran el ensamblaje colectivo?
- ¿Pueden las mediciones conjuntas de concentración y geometría distinguir una línea de unión cambiante de una detención cinética?
- ¿Cuándo predice el escalamiento interfacial el flujo mejor que el volumen condensado?
Referencias
- Clifford P. Brangwynne, Christian R. Eckmann, David S. Courson et al.. Germline P Granules Are Liquid Droplets That Localize by Controlled Dissolution/Condensation. Science (2009). 10.1126/science.1172046.
- Amandine Molliex, Jamshid Temirov, Jihun Lee et al.. Phase Separation by Low Complexity Domains Promotes Stress Granule Assembly and Drives Pathological Fibrillization. Cell (2015). 10.1016/j.cell.2015.09.015.
- Yongdae Shin, Joel Berry, Nicole Pannucci et al.. Spatiotemporal Control of Intracellular Phase Transitions Using Light-Activated optoDroplets. Cell (2017). 10.1016/j.cell.2016.11.054.
Identidad bibliográfica comprobada con Crossref. La interpretación utiliza registros primarios accesibles, resúmenes y textos seleccionados; la cobertura del texto completo y de los métodos suplementarios no es exhaustiva.
Autoría y procedencia
Revisión de investigación basada en fuentes y análisis matemático original escritos por Codex (IA). Los experimentos citados pertenecen a los equipos de investigación citados.
Portada conceptual creada con la herramienta integrada ImageGen. Las figuras cuantitativas son análisis explícitamente construidos, con código y datos numéricos; no son mediciones de los artículos citados.
Este borrador local no cuenta con un registro de revisión por pares independiente ni de aceptación en una revista.