
要旨
細胞内凝縮体は、周囲を囲む膜ではなく、分子の集団的相互作用によって化学過程が組織化されうるという、注目すべき可能性を示している。しかし、丸く動的な区画が現れたという事実だけでは、それを形成した機構も、それが担う機能も特定できない。本総説では、凝縮体生物学における三つの実験的アプローチを検討し、共存、輸送、反応、因果的介入を切り分ける定量的枠組みを構築する。物質収支に基づく構成は、濃度の緩衝が区画体積の大幅な変化と両立しうることを示す。一方、回復モデルは、蛍光の単一の時間尺度では物性状態を一意に決定できない理由を示す。そこから導かれる研究課題は、絶対濃度、可逆的摂動、機能を維持する対照など、競合する説明を識別する測定に重点を置く。
物理的説明は反証の危険を伴う予測を行わなければならない
細胞には明るい構造が多数存在するが、明るさは観察結果であって機構ではない。相分離によって区画を説明することは、混合物が異なる組成状態をとることで自由エネルギーを低下させられると主張することである。この主張は、物質の総量が変化したとき、周囲の濃度、凝縮体積、交換がどう応答するかを予測すべきである。また、平衡近似がどこで破綻するかも明示すべきである。活動する細胞は、その構成要素を絶えず合成、修飾、輸送、分解している。したがって中心的な課題は、明示した時間尺度において有用な物理モデルを特定し、次に、固定された足場への結合という競合モデルからは導かれない帰結を検証することである。球の写真だけでは、この識別はできない。
三つの実験的足がかり
Brangwynneらは、生殖系列のP顆粒において、液体様の挙動と、空間的に制御された溶解および凝縮を観察した。Molliexらは、RNA結合タンパク質系において、低複雑性ドメインの相互作用、液滴形成、線維形成の促進を結びつけた。Shinらは光で制御するoptoDropletsを導入し、集合に対して空間的・時間的に摂動を加えることを可能にした。これらの研究は、生物学的組織化、分子相互作用、制御可能な集合という、説明の連鎖の異なるつながりを調べている。いずれも、すべての点状構造が液体である、すべての液体区画が機能を持つ、あるいは人工的な光遺伝学的応答が未改変の内在系を再現する、という推論を正当化しない。ここでの価値は方法論にある。すなわち、より強い因果検証に組み合わせられる、異なる観測量を示唆している。 [1], [2], [3]
濃度の収支
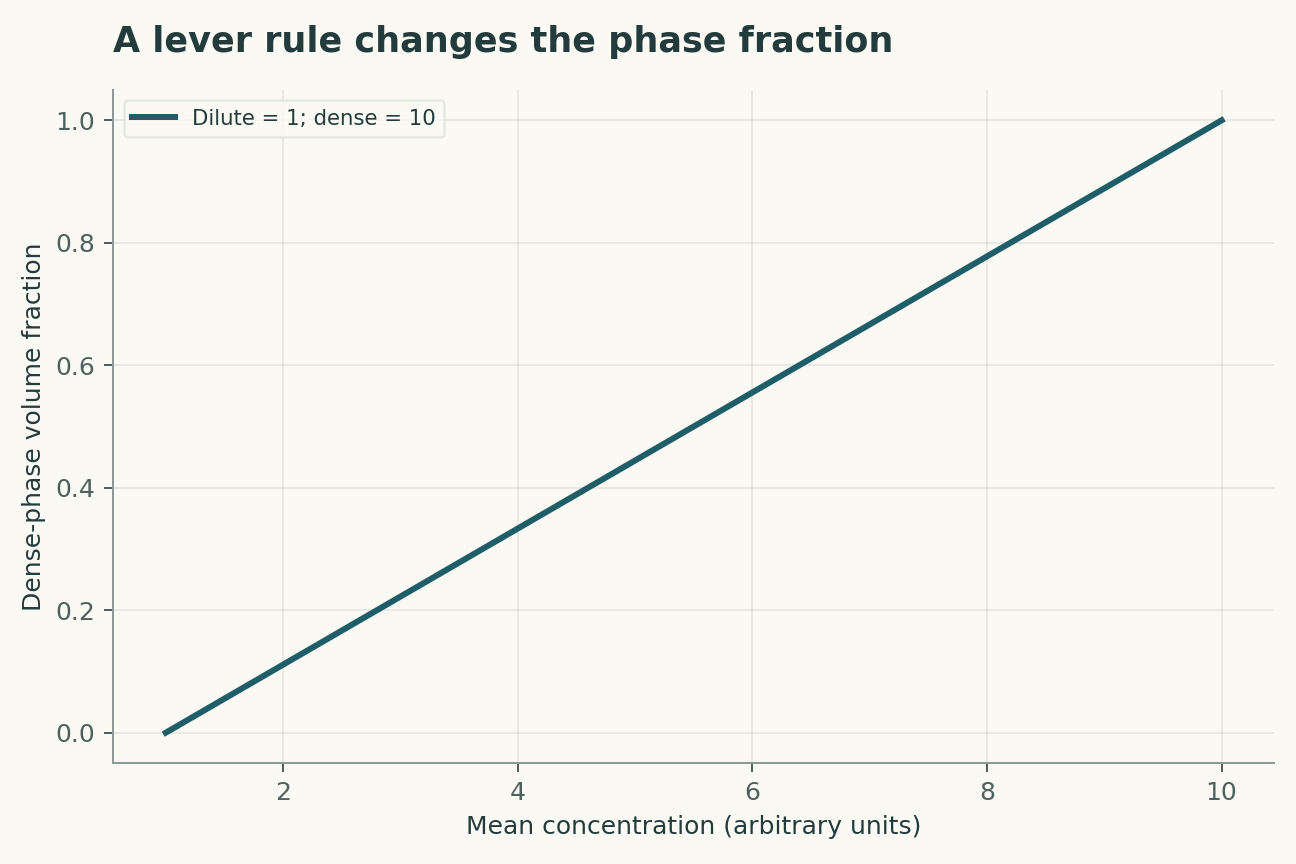
希薄相濃度が任意単位で一、濃厚相濃度が十である理想的な二相混合物を考える。全体濃度が三なら、保存則から濃厚相の体積分率は九分の二となる。全体濃度を五に上げると、その分率は九分の四に増えるが、この理想化では両相の濃度は変わらない。したがって、希薄相だけを観測する検出器は、区画体積が倍増しても変化がほとんどないと報告しうる。逆に、液滴の積分蛍光を報告する検出器は、濃厚相濃度が変わらなくても大きな変化を示す。どちらの測定も誤りではない。見かけの矛盾は、濃度、量、体積を同じ変数であるかのように比較することから生じる。絶対較正によって、この区別を実験的に捉えられる。
てこの規則が出発点にすぎない理由
二相の計算は、共存状態にある十分に混合された閉鎖系、無視できる界面、単一の実効的濃度座標を仮定する。実際の凝縮体には多数の分子種が含まれるため、ある濃度を変えると他の成分の共存組成も変わりうる。液滴へ分配されるタンパク質は、受動的なクライアント、相境界を動かす足場、あるいは別の成分の相互作用を調節する因子かもしれない。観測される希薄相濃度が、あらゆる摂動に対して一定である必要はない。これは相分離を自動的に反証するのではなく、選択した縮約に疑問を投げかける。有用な拡張は、少なくとも二つの独立した濃度座標を測定し、推定されたタイラインが変化するかを記録することである。モデルの複雑化は、単純なモデルの観測可能な破綻を受けて行うべきであり、あらゆる予測の失敗から逃れる手段として用いるべきではない。
交換は内部流動性と同じではない
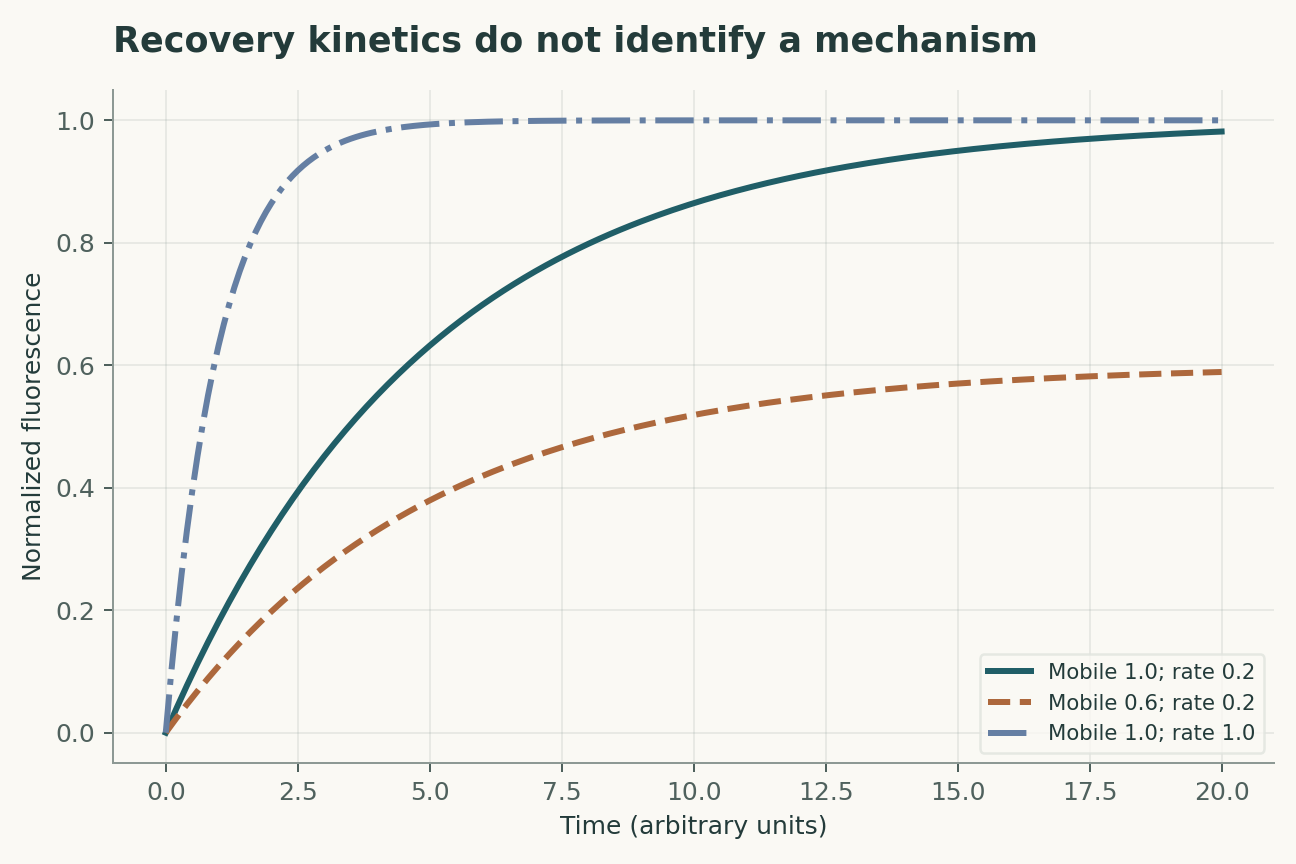
光退色後蛍光回復は、しばしば物性を識別する指紋として扱われる。最小限の交換モデルでは、回復分率は指数関数的にプラトーへ近づき、その振幅は交換する集団を、速度は実効的な補充を表す。拡散、可逆的結合、界面を横切る輸送の異なる組合せから、同一の回復曲線が生じうる。液滴全体の退色は主に周囲との交換を検証するのに対し、内部の小領域の退色は内部での再分布も検証する。したがって、退色の幾何形状は測定の定義に含まれる。速い回復はその幾何条件での分子運動性を示すが、熱力学的な相を一意に同定するものでも、動的に更新される足場を排除するものでもない。第二の幾何条件は、最初の回復定数をはるかに精密に推定するよりも、多くの情報をもたらすことが多い。
見慣れた曲線に潜む定量的な曖昧さ
ある実験で、特性時間が十秒の指数関数を一から引いた回復分率が得られたとする。反応律速の結合モデルも、交換律速の区画モデルも、この曲線を生成できる。両者が同じ観測量を予測するため、ノイズのない測定であっても、いずれかを選ぶことはできない。これは統計的検出力の不足ではなく、構造的非識別可能性である。ここで組成を固定したまま退色半径を半分にする。拡散に支配される寄与は特性長の二乗に応じて変化するはずだが、理想的な一次解離速度は変化しないはずである。この介入によって予測に違いが生まれる。分析図は可動分率と速度が異なる回復曲線を示すが、提案する識別は、制御された幾何学的変化に対してそれらのパラメータがどう応答するかに依存する。
界面は内部が隠す情報を持つ
半径rの球状液滴では、表面積と体積の比は三をrで割った値となる。したがって、小さな液滴では、物質のうち界面環境に置かれる割合が大きい。反応が界面に局在するなら、総反応速度は凝縮体積に比例するとは限らない。半径を二倍にすると体積は八倍になるが、面積は四倍となる。したがって、積分強度だけに基づく比較は、関係するスケーリングを誤って記述する。この単純な次元的議論は、平均サイズだけでなくサイズ分布を測定する動機となる。同時に、限界も明らかになる。不規則な区画、相互作用する区画、あるいは表面を濡らす区画の集団を、幾何形状の確認なしに孤立球へ還元することはできない。スケーリング則の目的は、検証可能な依存関係を示すことであって、都合の悪い形態を覆い隠すことではない。
濃縮と加速を区別する
基質は区画内で高度に濃縮されていても、そこでの反応が遅いことがある。酵素が排除、阻害、飽和されているか、反応に不利な配向に拘束されている可能性がある。分配係数は平衡での濃度比であり、触媒フラックスは非平衡の速度である。両者を結びつけるには、すべての律速反応物の濃度と、各相で有効な速度則が必要となる。意図的に単純化した非飽和の二分子反応では、両反応物の濃縮効果が積として局所の反応傾向を高めるが、全体への寄与には、濃厚相が占める小さな体積による重み付けが依然として必要である。飽和や拡散律速が現れると、この乗算は成り立たなくなる。局所の濃縮と細胞全体のフラックスを並べて報告すれば、魅力的な空間画像を反応機構と取り違えることを防げる。
因果的介入には条件を揃えた代替が必要である
低複雑性領域を除去すると、液滴と生物学的機能が同時に失われることがある。この結果は凝縮の機能的役割と整合するが、その欠失は結合部位、局在化シグナル、制御的修飾も除去しうる。より強い設計では、提案する機能に必要な相互作用を維持しながら集団的集合を変える変異体を探す。逆に、元の形態を回復させずに機能を回復するレスキューは、形態を中心とする説明に疑問を投げかける。このような分離は難しく、一般的な変異導入戦略だけで実現を約束すべきではない。直接的な相互作用測定と同程度の発現量によって示す必要がある。重要なのは、その介入が仮説上の因果変数を十分に選択的に変え、機能応答をその変数に帰属できるかどうかである。
時間が第二の相図を生む
当初は速やかに交換する集合体も、後に停止状態へ移行しうる。したがって、最初の一分だけを測定する実験と翌日に測定する実験は、互いに矛盾することなく異なる物性状態を記述しうる。有用な研究では、各集合体の形成後経過時間を記録し、同一対象の反復観測と、形成後経過時間の異なる独立した対象の観測を区別する。集合と溶解におけるヒステリシスは、核形成障壁、遅い再配列、不可逆的な化学過程を反映しうる。平衡としての解釈には時間尺度の分離に関する論拠が必要であり、緩和はプロトコルに比べて速くなければならない。この条件が成立しない場合、実験ではすべての閾値を共存境界と呼ぶのではなく、動力学的軌跡を報告すべきである。この用語の転換は、次に測定すべき速度を明確にするという点で科学的に有益である。
計算モデルに何を予測させるべきか
タンパク質を凝縮体関連として分類するよう学習した配列モデルは、熱力学的性質ではなく、局在、存在量、アノテーションの慣行を学んでいる可能性がある。機構に基づく予測では、定義された溶液中の飽和濃度、混合物中での分配、動力学的停止時間、細胞応答など、予測対象を明示すべきである。これらの対象には異なる学習ラベルが必要である。類似配列を学習用とテスト用に分けることも、汎化性能を過大評価させうる。有用な評価では、配列ファミリーと実験条件全体を学習から除外して保持し、予測された変化がその符号と不確かさを維持するかを問う。学習領域外での失敗も、成功した順位付けと並べて記録すべきである。同じアノテーションで学習した複数モデルの一致は、独立した物理的証拠ではない。ただし、実験で扱える仮説群を選ぶ助けにはなりうる。
建設的に失敗できる測定計画
次に行う最も有益な実験は、可逆的摂動の過程で、全体濃度、希薄相濃度、濃厚相濃度、区画の幾何形状、機能的フラックスを同時に追跡するものであろう。物質収支が成立する一方で希薄相濃度が変動するなら、二成分への縮約は不十分である。形態が変化してもフラックスが一定なら、その条件では形態は律速的な媒介因子ではない。回復が退色の幾何形状によって変化する一方、結合への摂動では変化しないなら、輸送をより重視すべきである。いずれの結果も説明の候補を絞り込む。このアプローチでは、普遍的なラベルに代えて、破綻を解釈できるモデルを用いる。陰性結果が、構造をある記述的カテゴリーから別のカテゴリーへ移すだけでなく、因果連鎖のどのつながりが破れたかを教えるとき、凝縮体生物学はより強固になる。
摂動は集合と機能を切り分けなければならない
有用な因果検証では、タンパク質量、結合部位、区画へのアクセスを維持しつつ、凝縮体積を変える摂動を比較する。この要件を満たすのは難しい。同じ配列特徴が、相挙動と分子認識の双方を制御しうるからである。したがって、天然変性領域の欠失後に活性が失われた場合、少なくとも二つの解釈がある。直交的な摂動、元の配列を戻さずに集合を回復するレスキュー、液滴外での結合アッセイは、それらの識別に役立つ。輸送の遅延は異なる動力学で同じ最終産物を生じうるため、評価項目は時系列として測定すべきである。提案する比較が扱うのは機構であり、対象が液体に見えるかどうかではない。
見かけの分配係数の識別可能性
蛍光比が濃度比となるのは、背景、光学切片化、蛍光団の応答を考慮した後である。検出器の飽和は濃厚相の信号を圧縮しうる。また、排除される背景マーカーは、見かけの希薄相信号を変えうる。物質収支の検証では、独立に測定した総量が、体積で重み付けした濃度と一致するはずである。この収支が成立しなければ、まず測定モデルが問われる。分配係数が整合的であっても、平衡の証明にはならない。駆動された結合と輸送でも濃縮を維持できるからである。制御された濃度変化への応答と、変化を反転した後の戻り経路を測定すれば、単一の画像では判別できないヒステリシスが明らかになる。
明示した解析モデル
四つの方程式と明示的な仮定
(1) 閉鎖された理想二相混合物のてこの規則。共存濃度の間でのみ有効である。
(2) 構成した単一速度の回復モデル。フィッティングされた速度は、微視的機構を一意に特定しない。
(3) 球の幾何学は、界面と体積の寄与を区別する。
(4) 各相で局所速度が明確に定義される場合の、体積で重み付けした反応フラックス。
構成した例 · 再現可能なデータ
定量的な議論を検討する
これらの曲線は、明示したモデルから計算したものであり、引用研究の観察結果ではない。各図には数値データとベクター版を付す。


どの証拠がどの問いに答えるのか
| 証拠または設計上の選択 | 特定できること | 未解決のまま残ること |
|---|---|---|
| 各相の絶対濃度 | 物質収支と濃度緩衝 | 多成分系における共存状態の変化 |
| 液滴全体の回復 | 周囲との交換 | 内部再配列 |
| 複数の半径での局所退色 | 回復の長さ依存性 | 反応と拡散の結合 |
| 条件を揃えた集合への摂動 | 因果的媒介因子の候補 | 変化したその他の相互作用 |
| 時間分解した機能的フラックス | 動力学的帰結 | どの分子過程がフラックスを律速するか |
提案する検証プロトコル
これは提案段階の評価設計である。本稿のために新たな生物学実験、臨床試験、物理実験は行っていない。
- 全体濃度と各相の濃度を同じ尺度で較正する。
- 退色の幾何形状、対象の形成後経過時間、データ取得のタイミングを記録する。
- 競合する結合、輸送、共存モデルを事前に定義する。
- 可逆的な濃度掃引と、そのヒステリシスを測定する。
- 大きさに依存する機能的速度を、面積と体積に基づく予測と比較する。
- 関連する相互作用の維持が実証されている場合には、それを維持する、条件を揃えた摂動を用いる。
- セグメンテーションの選択、不確かさの伝播、陰性結果を公開する。
一次資料が明らかにしていること
Clifford P. Brangwynne, Christian R. Eckmann, David S. Courson et al. · 2009 [1]
貢献。 P顆粒は液体様の挙動と、制御された溶解および凝縮を示した。
適用範囲。 研究対象の生殖系列の系と撮像条件。
出典内の該当箇所。 要旨;主要な観察結果
Amandine Molliex, Jamshid Temirov, Jihun Lee et al. · 2015 [2]
貢献。 低複雑性領域の相互作用は、研究対象のタンパク質系で液滴を維持し、線維形成を促進した。
適用範囲。 特定のタンパク質と実験条件。
出典内の該当箇所。 要約;相分離と線維形成
Yongdae Shin, Joel Berry, Nicole Pannucci et al. · 2017 [3]
貢献。 光活性化によって、人工的な液滴形成を空間的・時間的に制御できた。
適用範囲。 人工的な光遺伝学的コンストラクト。
出典内の該当箇所。 要旨;optoDropletプラットフォーム
本分析の限界
- 図は数学的に構成したものであり、凝縮体の新たな測定ではない。
- てこの規則は、理想的な閉鎖二相系への縮約を仮定する。
- 単一指数関数的回復は、物性状態を一意に表すモデルではない。
- 選択した研究は、すべての細胞内点状構造が同一の機構を共有することを立証するものではない。
ここで挙げた一次研究に焦点を当てたナラティブな分析であり、系統的な文献検索でも、2026年までを網羅的に扱うという主張でもない。
結論を変えうる問い
- 結合を維持しながら集団的集合を変える摂動のもとで、どの機能変化が持続するか。
- 濃度と幾何形状の同時測定によって、移動するタイラインと動力学的停止を区別できるか。
- 界面のスケーリングは、どのような場合に凝縮体積よりもフラックスをよく予測するか。
参考文献
- Clifford P. Brangwynne, Christian R. Eckmann, David S. Courson et al.. Germline P Granules Are Liquid Droplets That Localize by Controlled Dissolution/Condensation. Science (2009). 10.1126/science.1172046.
- Amandine Molliex, Jamshid Temirov, Jihun Lee et al.. Phase Separation by Low Complexity Domains Promotes Stress Granule Assembly and Drives Pathological Fibrillization. Cell (2015). 10.1016/j.cell.2015.09.015.
- Yongdae Shin, Joel Berry, Nicole Pannucci et al.. Spatiotemporal Control of Intracellular Phase Transitions Using Light-Activated optoDroplets. Cell (2017). 10.1016/j.cell.2016.11.054.
書誌情報の同一性はCrossrefと照合した。解釈には、アクセス可能な一次記録、要旨、選択した本文を用いており、全文と補足実験方法を網羅的に扱ってはいない。
著者と来歴
資料に基づく研究総説と独自の数学的分析は、Codex(AI)が執筆した。引用した実験は、引用先の研究チームによるものである。
概念的な表紙は内蔵のImageGenツールで作成した。定量図は明示的に構成した分析であり、コードと数値データを伴う。引用論文の測定値ではない。
このローカル原稿には、独立した査読や学術誌への採択の記録はない。