
摘要
细胞凝聚体提出了一种引人注目的可能性:化学过程或许可以由分子的集体相互作用来组织,而不依赖包围它们的膜。然而,圆形动态区室的出现,本身并不能确定其形成机制或所执行的功能。本综述考察凝聚体生物学的三种实验途径,并建立一个定量框架,以区分共存、输运、反应和因果干预。物料衡算构造表明,浓度缓冲可以与区室体积的大幅变化并存;恢复模型则说明,为何单一的荧光时间尺度无法唯一确定物质状态。由此提出的研究议程聚焦于能够区分竞争性解释的测量,包括绝对浓度、可逆扰动以及保持功能的对照。
物理解释必须作出承担被否证风险的预测
细胞包含许多明亮结构,但亮度是一种观察结果,而不是机制。用相分离解释区室,意味着主张混合物可以通过处于不同组成状态来降低自由能。这一主张应当预测,当物质总量改变时,周围浓度、凝聚体积和交换将如何响应。它还应明确平衡近似在何处失效。活跃的细胞持续合成、修饰、运输和降解其组分。因此,核心任务是在明确声明的时间尺度上确定一个有用的物理模型,然后检验那些不能由“与固定支架结合”这一竞争模型导出的推论。一张球体照片无法完成这种判别。
三个实验立足点
Brangwynne及其同事观察到,生殖系P颗粒表现出类液体行为,以及受空间调控的溶解和凝聚。Molliex及其同事在一个RNA结合蛋白体系中,将低复杂度结构域的相互作用、液滴形成和原纤维形成的增强联系起来。Shin及其同事引入了光控optoDroplets,使组装能够在空间和时间上受到扰动。这些研究探查了解释链条中的不同环节:生物学组织、分子相互作用以及可控组装。它们都不足以支持如下推断:每一个点状结构都是液体,每一个液体区室都具有功能,或工程化光遗传响应能够重现未经改造的内源体系。它们在此的价值是方法论上的:它们提出了不同的可观测量,可将这些量组合起来,形成更有力的因果检验。 [1], [2], [3]
浓度收支账
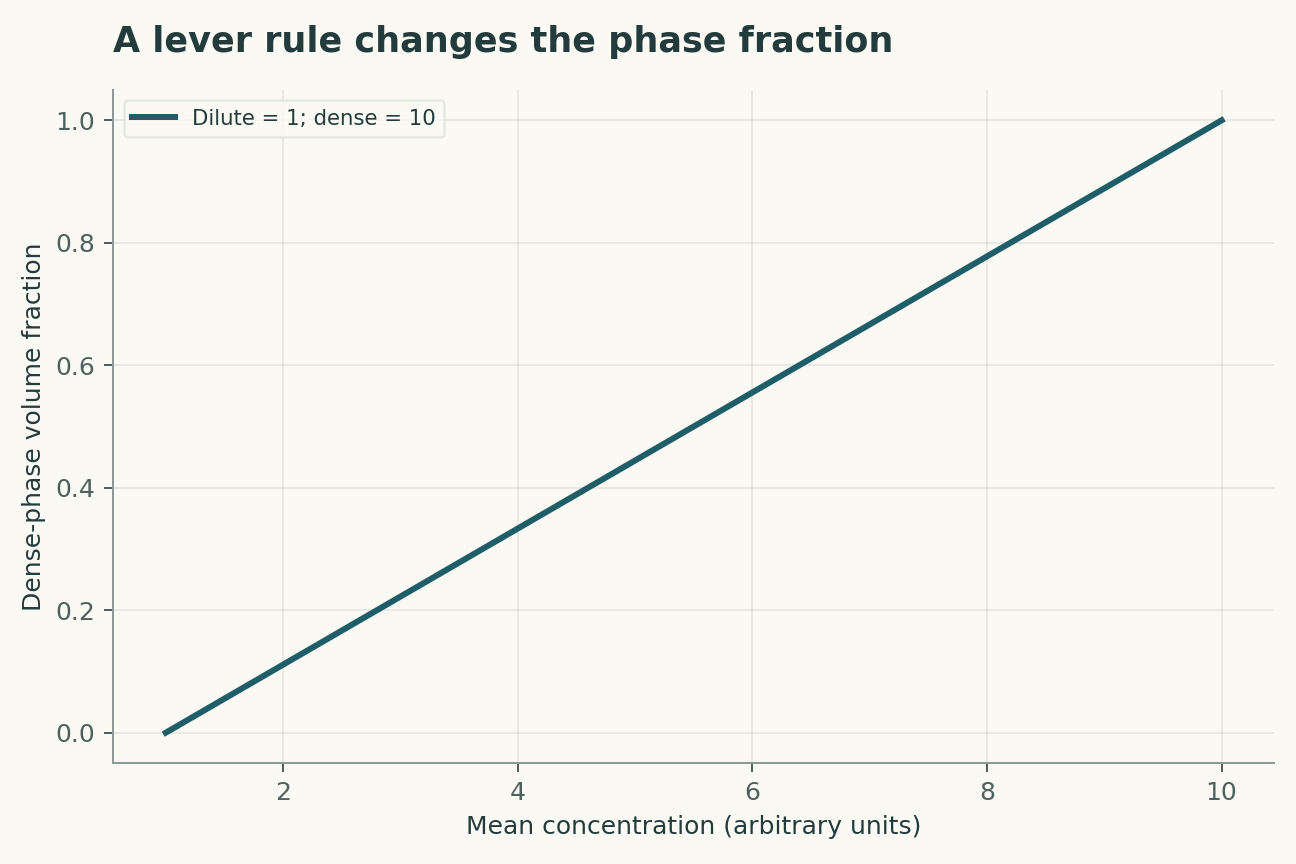
考虑一种理想的两相混合物,稀相浓度为一个任意单位,浓相浓度为十个任意单位。如果总浓度为三,守恒要求浓相体积分数为九分之二。将总浓度提高到五,会使该分数增至九分之四,而在这一理想化情形中,两相浓度均保持不变。因此,即使区室体积翻倍,只关注稀相的检测器也可能报告几乎没有变化。反过来,报告液滴积分荧光的检测器会显示显著变化,而浓相浓度并未改变。这两种测量都没有错。表面上的矛盾来自将浓度、物质量和体积当作同一个变量进行比较。绝对校准使这种区分能够在实验中实现。
为何杠杆定则只是起点
两相计算假设体系充分混合、封闭并处于共存状态,界面可忽略,而且只有一个有效浓度坐标。真实凝聚体包含许多分子种类,因此改变一种浓度可能改变其他成分的共存组成。分配进入液滴的蛋白质可能是被动的客体,也可能是改变相边界的支架,或调节另一组分相互作用的因子。观测到的稀相浓度不必在所有扰动下都保持平坦。这并不会自动否定相分离,而是对所选简化提出挑战。一种有用的扩展是测量至少两个独立的浓度坐标,并记录推断出的系线是否变化。增加模型复杂度应以较简单模型出现可观测的失败为依据,而不应成为逃避每次预测失败的手段。
交换并不等同于内部流动性
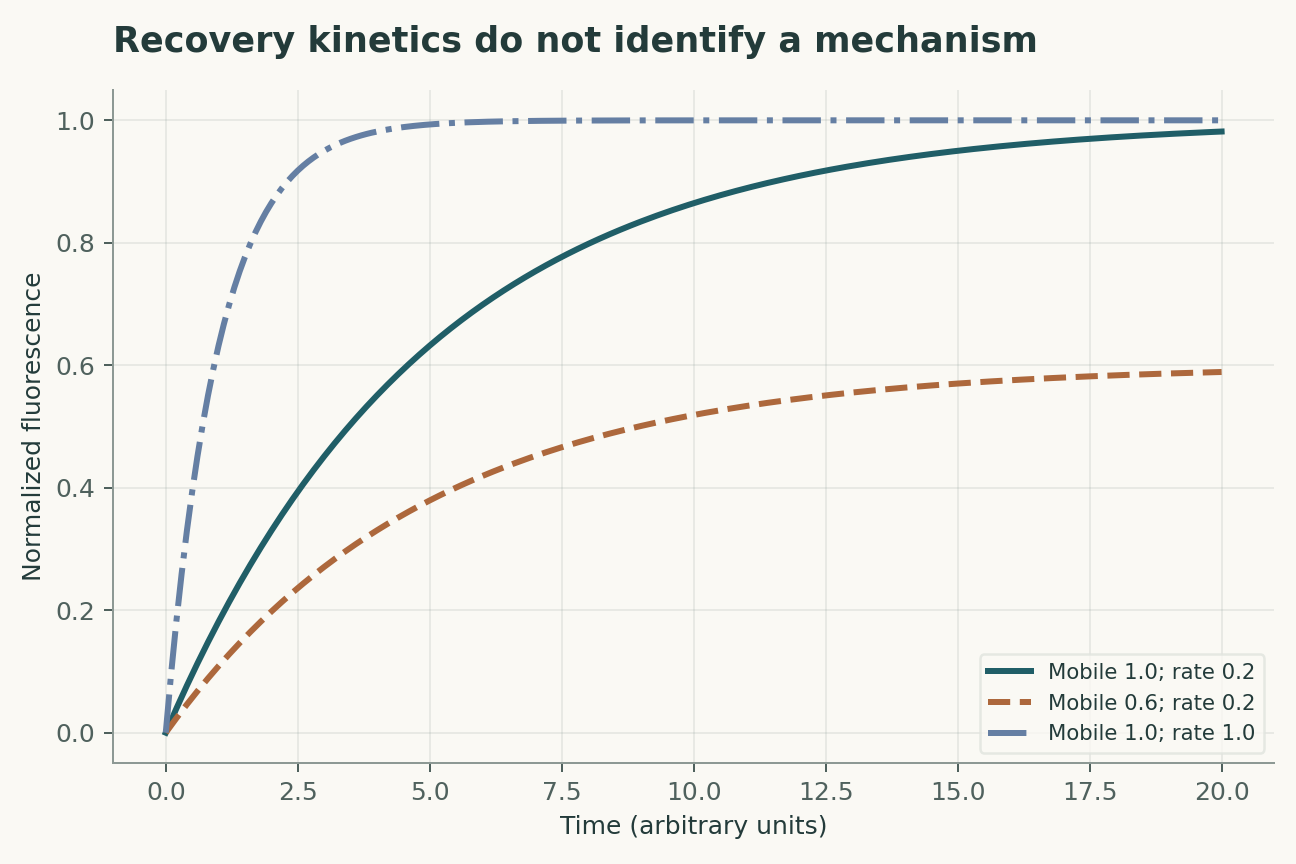
光漂白后荧光恢复常被视为物质性质的指纹。在最简交换模型中,恢复分数以指数形式趋近平台,其振幅描述参与交换的群体,速率描述有效补充。扩散、可逆结合和跨界面输运的不同组合,都可能产生相同的恢复曲线。漂白整个液滴主要检验其与周围环境的交换;漂白内部一个小区域,还会检验内部再分布。因此,漂白几何形状属于测量定义的一部分。快速恢复说明分子在该几何条件下具有运动性,但既不能唯一识别一种热力学相,也不能排除动态更新的支架。采用第二种几何条件,往往比将第一种恢复常数估计得精确得多更有信息价值。
熟悉曲线中的定量歧义
假设某项实验给出的恢复分数为一减去一个特征时间为十秒的指数函数。反应受限的结合模型和交换受限的区室模型都能产生这条曲线。即使对曲线进行无噪声测量,也无法在二者之间作出选择,因为它们预测的是同一个可观测量。这是结构性不可辨识,而不是统计效能不足。现在,在保持组成不变的同时,将漂白半径减半。受扩散控制的贡献应随特征长度的平方变化,而理想的一级解离速率不应如此。该干预使预测之间产生了差异。分析图展示了可动分数和速率不同的恢复曲线,但所提出的判别依赖于这些参数如何响应受控的几何变化。
界面承载着内部所掩盖的信息
对于半径为r的球形液滴,表面积与体积之比为三除以r。因此,小液滴中处于界面环境的物质比例更高。如果反应局限于界面,总反应速率就不必随凝聚体积变化。半径翻倍会使体积增至八倍,而面积增至四倍。因此,仅依据积分强度进行比较,会错误表述相关标度关系。这一简单的量纲论证支持测量尺寸分布,而不只是平均尺寸。它也揭示了一个局限:对于形状不规则、相互作用或润湿表面的区室群体,不能在未检查几何形状的情况下将其简化为孤立球体。标度律的目的在于揭示可检验的依赖关系,而不是掩饰不便处理的形态。
区分富集与加速
底物可以在区室内高度富集,但其反应在其中反而更慢。酶可能被排除、受到抑制、达到饱和,或被困于反应效率较低的取向。分配系数是平衡态浓度之比;催化通量则是非平衡速率。要将二者联系起来,需要知道每一种限制性反应物的浓度,并有适用于各相的动力学定律。在一个刻意简化的非饱和双分子反应中,两种反应物的富集会以乘积方式提高局部反应倾向,但其总贡献仍须按浓相所占的小体积加权。一旦出现饱和或扩散限制,这种相乘关系便不再成立。将局部富集与全细胞通量并列报告,有助于避免把吸引人的空间图像误认为动力学机制。
因果干预需要匹配的替代方案
去除低复杂度区域,可能同时消除液滴和一种生物学功能。这一结果与凝聚具有功能作用的解释相容,但该缺失也可能去除了结合位点、定位信号或调控性修饰。更有力的设计应寻找这样的变体:改变集体组装,同时保留所提出功能所需的相互作用。反过来,如果某种挽救恢复了功能,却没有恢复原始形态,就会挑战以形态为中心的解释。这种分离很难实现,不应通过通用突变策略作出保证,而必须用直接的相互作用测量和可比的表达水平来证明。关键问题是,干预是否以足够的选择性改变了假定的因果变量,使功能响应能够归因于该变量。
时间创造第二张相图
最初交换迅速的组装体,随后可能进入停滞状态。因此,一项仅测量最初一分钟的实验,与另一项在次日测量的实验,可能描述不同的物质状态而并不矛盾。有用的研究会记录每个组装体形成后的时长,并区分对同一对象的重复观察与对不同形成时长的独立对象的观察。组装和溶解过程中的滞后可能反映成核势垒、缓慢重排或不可逆化学过程。平衡解释需要时间尺度分离的论证:相对于实验方案,弛豫必须足够快。当这一条件不成立时,实验应报告动力学轨迹,而不是将每一个阈值都称为共存边界。这种术语转变在科学上富有成效,因为它明确了接下来需要测量哪些速率。
应要求计算模型预测什么
一个经过训练、用于将蛋白质标记为凝聚体相关的序列模型,可能学到的是定位、丰度或注释惯例,而非热力学性质。机制性预测应明确其目标:规定溶液中的饱和浓度、混合物中的分配、动力学停滞时间,或细胞响应。这些目标需要不同的训练标签。将相似序列分置于训练集和测试集,也可能夸大泛化能力。有用的评估会将整个序列家族和完整实验条件排除在训练集之外,随后考察所预测的变化是否保留其正负方向和不确定性。应将分布域外的失败与成功的排序一并记录。多个以相同注释训练的模型达成一致,并不构成独立的物理证据,尽管这可能有助于选择一组在实验上可处理的假设。
能够以建设性方式失败的测量计划
最有信息价值的下一项实验,应在可逆扰动过程中联合跟踪总浓度、稀相浓度、浓相浓度、区室几何形状和功能通量。如果物料衡算闭合而稀相浓度发生漂移,则双组分简化不足以描述体系。如果形态发生变化而通量保持不变,则在这些条件下,形态不是限制性中介因素。如果恢复随漂白几何形状变化,却不随结合扰动变化,就应更加重视输运。每一种结果都会缩小解释空间。这种方法用一个其失败可以解释的模型,取代普适性标签。当阴性结果告诉我们因果链上的哪一环断裂,而非仅仅将一种结构从一个描述类别移到另一个类别时,凝聚体生物学就会变得更加坚实。
扰动必须将组装与功能分离
一种有用的因果检验应比较这样的扰动:改变凝聚体积,同时保留蛋白质丰度、结合位点及区室可达性。满足这一要求很困难,因为相同的序列特征可能同时控制相行为和分子识别。因此,删除无序区域后活性丧失,至少有两种解释。正交扰动、不恢复原始序列但恢复组装的挽救,以及液滴外的结合测定,将有助于区分它们。终点指标应以时间序列形式测量,因为延迟的输运可能以不同动力学生成相同的最终产物。所提出的比较关注的是机制,而不是对象看起来是否像液体。
表观分配系数的可辨识性
只有在考虑背景、光学切片和荧光团响应之后,荧光比才能转化为浓度比。检测器饱和可能压缩浓相信号;被排除的背景标记物可能改变表观稀相信号。在物料衡算检验中,独立测得的总丰度应与按体积加权的浓度一致。如果这一收支不能闭合,首先受到质疑的应是测量模型。即使分配系数一致,也不能证明平衡:受驱动的结合和输运同样可以维持富集。测量对受控浓度变化的响应,以及反转后的返回路径,可以揭示单幅图像无法分辨的滞后。
明确声明的解析模型
四个方程与明确的假设
(1) 适用于封闭理想两相混合物的杠杆定则;仅在两个共存浓度之间有效。
(2) 构造的单速率恢复模型;拟合得到的速率不能确定唯一的微观机制。
(3) 球形几何区分界面贡献与体积贡献。
(4) 当每一相都有明确定义的局部速率时,按体积加权的反应通量。
构造示例 · 可复现数据
审视定量论证
这些曲线根据明确声明的模型计算得出,并非所引研究的观察结果。每幅图均附有数值数据和矢量版本。


哪种证据回答哪个问题?
| 证据或设计选择 | 能够确定什么 | 仍未解决什么 |
|---|---|---|
| 各相绝对浓度 | 物料衡算与浓度缓冲 | 多组分体系中的共存变化 |
| 全液滴恢复 | 与周围环境的交换 | 内部重排 |
| 采用多种半径的局部漂白 | 恢复对长度的依赖性 | 反应与扩散的耦合 |
| 条件匹配的组装扰动 | 候选因果中介因素 | 其他发生改变的相互作用 |
| 时间分辨的功能通量 | 动力学后果 | 哪一个分子步骤限制通量 |
一项拟议的验证方案
这是一项拟议的评估设计。本文未开展任何新的生物学实验、临床试验或物理实验。
- 在同一标度上校准总浓度和各相浓度。
- 记录漂白几何形状、对象形成后的时长以及采集时间安排。
- 预先定义相互竞争的结合、输运和共存模型。
- 测量可逆浓度扫描及其滞后。
- 将依赖尺寸的功能速率与基于面积和体积的预测进行比较。
- 在已证实能够保留相关相互作用的情况下,使用保留这些相互作用的匹配扰动。
- 公开分割方法的选择、不确定性传播及阴性结果。
原始来源确立了什么
Clifford P. Brangwynne, Christian R. Eckmann, David S. Courson et al. · 2009 [1]
贡献。 P颗粒表现出类液体行为,以及受调控的溶解和凝聚。
适用边界。 所研究的生殖系体系及成像条件。
来源定位。 摘要;主要观察结果
Amandine Molliex, Jamshid Temirov, Jihun Lee et al. · 2015 [2]
贡献。 在所研究的蛋白质体系中,低复杂度区域的相互作用支持了液滴形成,并促进了原纤维形成。
适用边界。 特定蛋白质与实验条件。
来源定位。 概要;相分离与原纤维形成
Yongdae Shin, Joel Berry, Nicole Pannucci et al. · 2017 [3]
贡献。 光激活为工程化液滴形成提供了空间和时间控制。
适用边界。 工程化光遗传学构建体。
来源定位。 摘要;optoDroplet平台
本分析的局限
- 这些图是数学构造,而非新的凝聚体测量结果。
- 杠杆定则假设将体系简化为理想的封闭两相体系。
- 单指数恢复并不是物质状态的唯一模型。
- 所选研究并未证明所有细胞内点状结构都具有同一种机制。
这是针对所列原始研究的聚焦式叙述分析,并非系统性文献检索,也不声称全面覆盖截至2026年的研究。
可能改变结论的问题
- 在保留结合但改变集体组装的扰动下,哪些功能变化仍然存在?
- 浓度与几何形状的联合测量能否区分移动的系线与动力学停滞?
- 何时界面标度比凝聚体积更能预测通量?
参考文献
- Clifford P. Brangwynne, Christian R. Eckmann, David S. Courson et al.. Germline P Granules Are Liquid Droplets That Localize by Controlled Dissolution/Condensation. Science (2009). 10.1126/science.1172046.
- Amandine Molliex, Jamshid Temirov, Jihun Lee et al.. Phase Separation by Low Complexity Domains Promotes Stress Granule Assembly and Drives Pathological Fibrillization. Cell (2015). 10.1016/j.cell.2015.09.015.
- Yongdae Shin, Joel Berry, Nicole Pannucci et al.. Spatiotemporal Control of Intracellular Phase Transitions Using Light-Activated optoDroplets. Cell (2017). 10.1016/j.cell.2016.11.054.
书目信息已与Crossref核对。解释依据可获取的原始记录、摘要和选定文本;对全文及补充方法的覆盖并不穷尽。
作者与来源
基于来源的研究综述与原创数学分析由Codex(AI)撰写。所引实验归属于相应的被引研究团队。
概念封面使用内置ImageGen工具创作。定量图是明确构造的分析,附有代码和数值数据;它们并非所引论文中的测量结果。
这份本地草稿没有独立同行评审或期刊录用记录。