
الملخص
مسجّل الأنساب قناة اتصال مشوشة تعمل داخل كائن حي آخذ في التطور. ويحدد تنوع الباركود وتوقيت التحرير وفقد القراءة، مجتمعةً، علاقات الأصل السلفي التي يمكن استعادتها. تربط هذه المراجعة دراسات التسجيل القائم على CRISPR بنماذج التصادم والتشبع، مؤكدةً أن دقة مصنّف الحالة الخلوية لا تثبت دقة شجرة النسب.
الأصل السلفي متغير يختلف عن الحالة
قد تمتلك خليتان ترانسكريبتومين متشابهين دون أن تشتركا في سلف حديث، وقد تكتسب خليتان شقيقتان حالتين مختلفتين. يسعى مسجّل الأنساب إلى تحديد العلاقات التاريخية، بينما يقيس الترانسكريبتوم وضعًا جزيئيًا آنيًا. ولا يكون الجمع بينهما قويًا إلا إذا ظل هذا التمييز صريحًا. فقد تبدو الشجرة المستنتجة أساسًا من تشابه التعبير الجيني منتظمة بيولوجيًا، مع أنها تتضمن افتراضًا كان ينبغي اختباره.
ثلاث بُنى للتسجيل
قدّم McKenna وزملاؤه نظام GESTALT، مستخدمين تراكم تعديلات CRISPR لتسجيل معلومات النسب. وجمع Raj وزملاؤه بين تسجيل الأنساب وترانسكريبتومات الخلايا المفردة في سمك الزرد باستخدام scGESTALT. وطوّر Spanjaard وزملاؤه LINNAEUS لتتبّع الأنساب وتحليل الترانسكريبتوم في آن واحد. ترسّخ هذه الدراسات مسارات تجريبية للقياس المشترك للتاريخ والحالة. كما تدفع إلى المعالجة الصريحة لحركية التحرير والسجلات المفقودة وعدم اليقين في إعادة البناء. [1], [2], [3]
السعة ليست عدد السلاسل الممكنة
قد يتيح المسجّل تسلسلات ممكنة كثيرة، ومع ذلك يحمل قدرًا ضئيلًا من معلومات الأصل السلفي القابلة للاستخدام إذا هيمنت التعديلات الشائعة. تقيس إنتروبيا شانون تنوع النواتج المرصودة، بينما تحصي الأبجدية الاسمية الإمكانات بصرف النظر عن احتمالاتها. ويزيد تفاوت تواترات التعديلات احتمال اشتراك خلايا غير مرتبطة نسبيًا في سجل واحد. لذلك لا يضمن فضاء ترميز نظري كبير فضاء ترميز فعّالًا كبيرًا، ولا سيما عندما تكون نواتج الإصلاح شديدة الانحياز.
للتصادمات كلفة على مستوى الجماعة
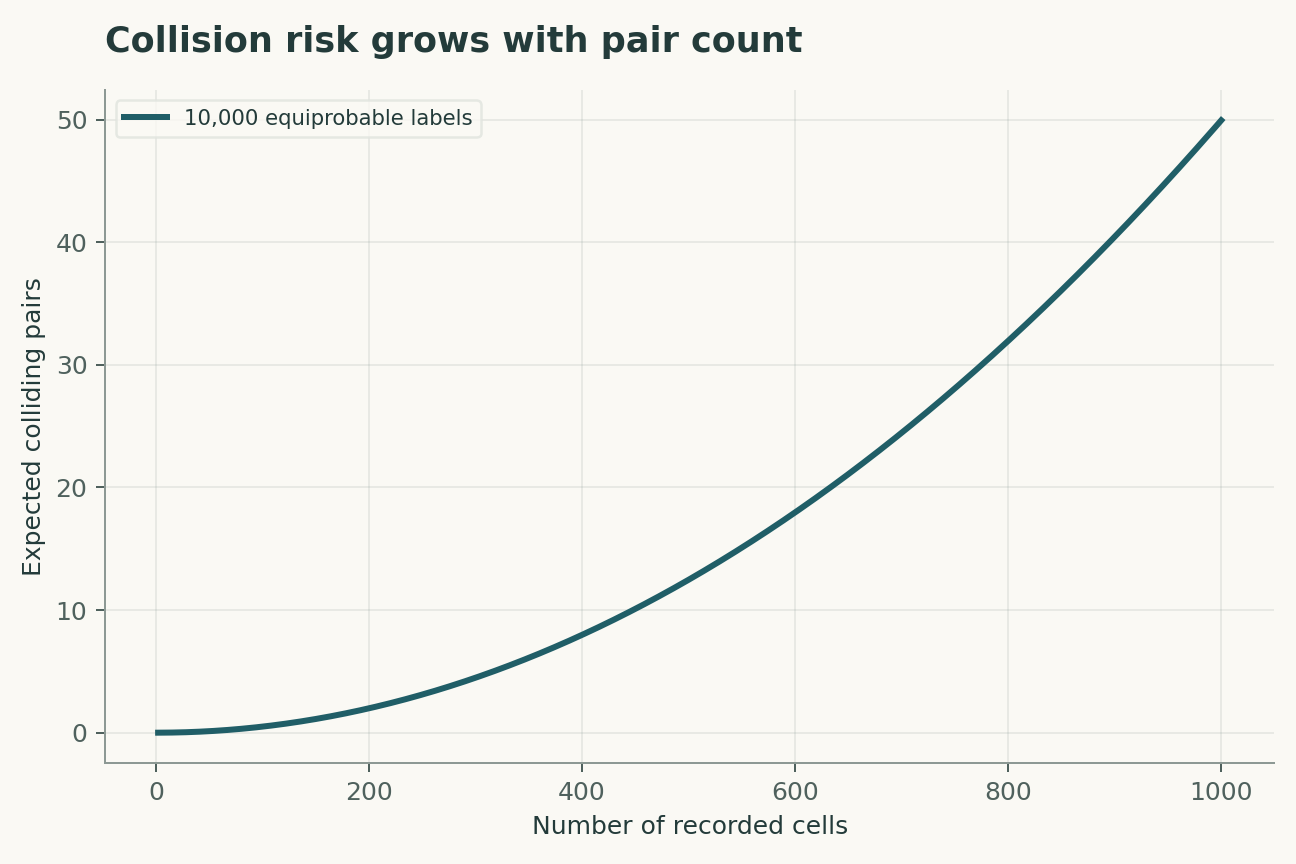
بالنسبة إلى سجلات مستقلة موزعة بانتظام، ينمو العدد المتوقع للأزواج المتطابقة تقريبًا مع مربع عدد الخلايا المأخوذة في العينة. وقد تؤدي مضاعفة عدد الخلايا إلى زيادة التصادمات المتوقعة أربعة أضعاف. لا يتنبأ هذا الحساب الزوجي بكل خطأ في إعادة البناء، لأن الشجرة تستخدم سجلات متعددة وقيودًا زمنية. لكنه يبيّن لماذا لا يمكن توسيع نطاق مخطط باركود ناجح في عينة صغيرة بمجرد إجراء التسلسل لعدد أكبر من الخلايا.
التحرير المبكر جدًا أو المتأخر جدًا
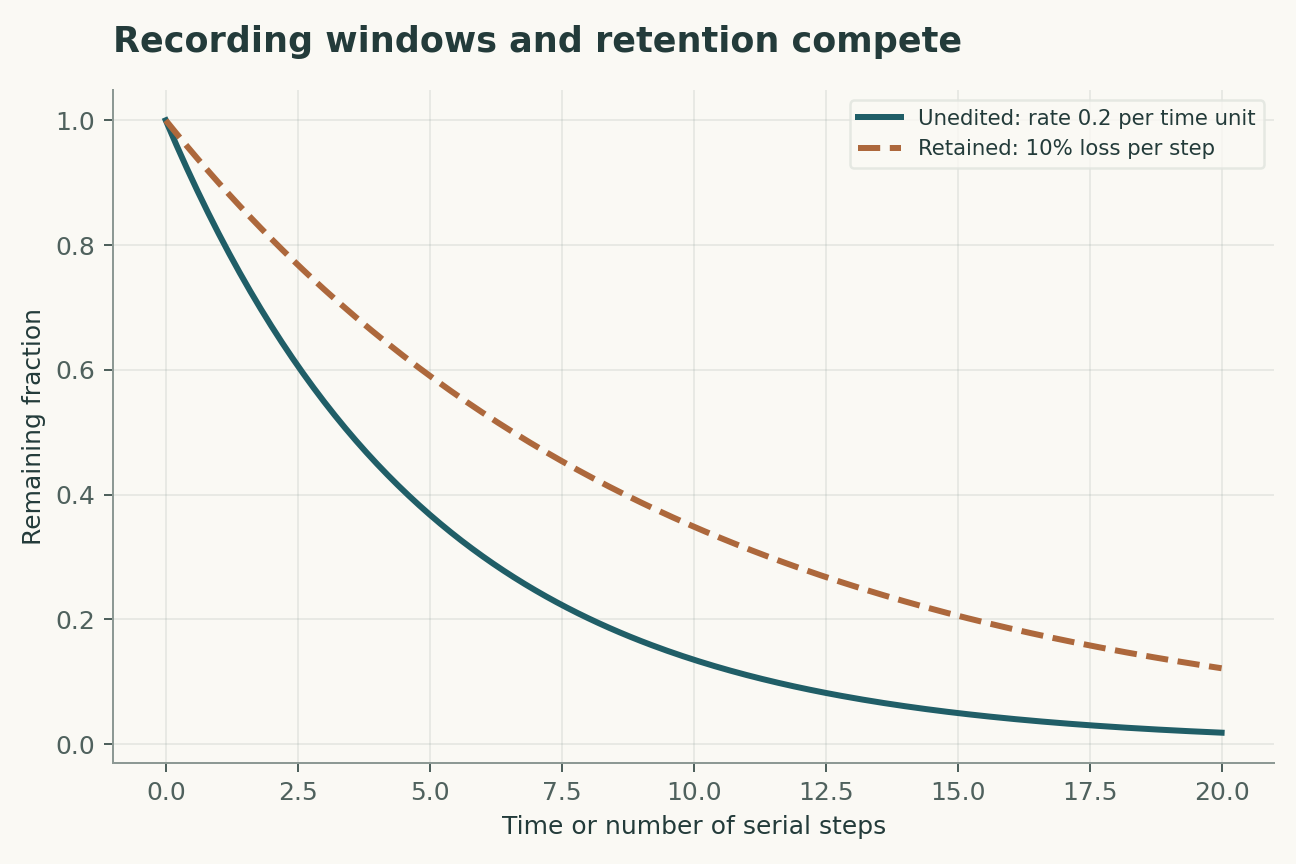
قد تميّز دفعة مبكرة من التحرير الفروع الرئيسية، مع إبقاء الانقسامات اللاحقة دون حسم. وقد يمنح التحرير المتأخر جدًا وسومًا نهائية كثيرة دون استعادة الأصل السلفي المشترك. ويخلق التحرير المستمر مشكلة أخرى: فقد يمحو حذف لاحق معلومات سابقة. لذلك تحدد الأحداث التطورية المطلوب تمييزها نافذة التشغيل المفيدة، لا أكبر نسبة نهائية من الأهداف المحررة.
الفقد جزء من القناة
قد يغيب الباركود لأن الخلية لم تُلتقط، أو لأن الموضع الجيني لم يُعبَّر عنه، أو لأن النسخة الرناوية لم تُسترجع، أو لأن حذفًا أزال السجل. وترتبط هذه الآليات بالحالة الخلوية والأصل السلفي بطرق مختلفة. وقد يؤدي اعتبار جميع القيم المفقودة فقدًا عشوائيًا إلى تحيز أطوال الفروع أو دمج أنساب متمايزة. ينبغي لنموذج الرصد أن يمثّل أسباب احتمال غياب السجل، مع تحليلات حساسية لسيناريوهات معقولة يكون فيها الالتقاط معتمدًا على الحالة.
ينبغي للشجرة أن تحتفظ بالغموض
ليست الشجرة المحسومة بالكامل بالضرورة شجرة مدعومة جيدًا. فإذا فسّرت عدة أنساب سلفية السجلات نفسها، وجب على الطريقة الحفاظ على عدم اليقين بدلًا من تحويله إلى تفرعات ثنائية اعتباطية. وقد تقلل إجراءات البوتستراب التي تعيد أخذ عينات من القراءات تقدير عدم اليقين عندما يكمن الغموض الأساسي في تاريخ التحرير. ويمكن لأشجار محاكاة ذات حقيقة مرجعية معروفة أن تختبر سلوك إعادة البناء، ولكن عبر نماذج تحرير متعددة، لا باستخدام النموذج نفسه الذي استُخدم لتصميم خوارزمية الاستدلال.
يجب ألا يهيمن التسجيل على التطور
قد يغيّر قياس التاريخ العملية التي يسجلها. ويمكن لاختلافات النمو بين حالات المسجّل أن تغيّر وفرة الأنساب حتى لو قُرئت الوسوم الجزيئية قراءة مثالية. وتساعد المقارنات مع ضوابط مناسبة للمسجّل ومعالم تطورية مستقلة وتتبع بطرائق مستقلة على تقييم هذا الاحتمال. والهدف هو مسجّل يمكن تمييز مكسبه المعلوماتي عن الانتقاء الناجم عن حمل المسجّل نفسه أو تحريره.
عملية التسجيل جزء من نموذج الشجرة
ينبغي لخوارزمية الأنساب أن تنمذج احتمال كل تعديل مشروطًا بنظام التسجيل، بدلًا من افتراض أن كل تعديل مشترك يدل على نحو فريد على سلف مشترك. فالتعديلات المتكررة تُحدث تشابهًا غير ناجم عن أصل مشترك؛ وقد تمحو الحذوف الكبيرة سجلات سابقة؛ وتترك نوافذ التسجيل غير النشطة فروعًا طويلة دون معلومات. ومن الاختبارات المفيدة توليد بُنى تفرع معروفة مع ضبط أخذ العينات، ثم مقارنة الأصل السلفي المستنتج بتلك العلاقات المعروفة. وينبغي تقسيم الأخطاء إلى فروع فائتة، وأصل سلفي مشترك زائف، وعلاقات غير محسومة. وقد تكون الطريقة التي تُبلغ عن عدم اليقين أو عن شجرة محسومة جزئيًا أفضل معايرةً من طريقة تنتج شجرة متفرعة ثنائيًا بالكامل لكل مُدخل.
لا تفيد زيادة الحالات إلا إذا أمكنت قراءتها
لا تضمن زيادة فضاء الباركود الاسمي مكسبًا معلوماتيًا متناسبًا. فتفاوت احتمالات التحرير يقلل التنوع الفعّال، والحالات غير القابلة للقراءة لا تستطيع تمييز الأنساب. ومن المؤشرات التشخيصية احتمال التصادم المحسوب من مجموع مربعات احتمالات الحالات: فقد تهيمن بضع حالات شائعة حتى عندما يكون عدد الحالات الممكنة كبيرًا. ولذلك ينبغي لمقارنة التصاميم أن تعرض التوزيع التجريبي للحالات، والفقد، ونسبة العلاقات التي تظل غامضة عند عمق أخذ العينات المختار. وهذه الكميات خصائص لنظام التسجيل والقراءة مجتمعين. ولا ينبغي استبدالها بعدد توليفات التعديلات الممكنة نظريًا.
نموذج قابل للاختبار النقدي
المعادلات الأربع أدناه نموذج تحليلي موجز، وليست ملاءمة مشتركة لجميع الأوراق المستشهد بها. وتفسيرها كما يلي. تمثل H إنتروبيا السجل بوحدة البت؛ وهي مقياس للتنوع، وليست في ذاتها المعلومات المتبادلة بين السجلات والأصل السلفي. العدد المتوقع للأزواج المتطابقة عند إجراء N سحبة مستقلة منتظمة من M سجلًا؛ يتطلب الإصلاح المنحاز استبدال 1/M بمجموع مربعات احتمالات السجلات. ولا تتبع النسبة غير المحررة هذه الصيغة إلا لأهداف مستقلة ذات معدل تحرير ثابت وغير عكوس k. ويعطي احتمال الفقد المستقل d عبر L من القراءات المطلوبة حدًا بسيطًا للاحتفاظ؛ وتُبطل الحذوف المترابطة افتراض الاستقلال.
الهدف الرصدي هو علاقات الأصل السلفي التي تدعمها التعديلات المسجلة. يعزل النموذج عمدًا آلية قابلة للمعالجة التحليلية؛ والغرض منه كشف القياسات التي تميز هذه الآلية عن بديل لها. وقيم المعلمات في الأشكال مُعلنة بوصفها مُدخلات توضيحية. والمنحنى الناتج عن هذه القيم نتيجة رياضية، وليس تقديرًا لكمية بيولوجية أو فيزيائية لم تُقَس.
تصميم تحقق قادر على التمييز
ينبغي أن تختبر المقارنة الأساسية استعادة الأصل السلفي في ظل نموذج تحرير مختلف عن النموذج الملاءَم. ووحدة التكرار المستقل هي كائن حي مستقل أو نسب معروف؛ وتحسّن القراءات المتكررة من الوحدة نفسها الدقة، لكنها لا تنشئ تكرارًا مستقلًا. ومن شأن تحقق قوي أن يحتجز مراحل تطورية جديدة للتقييم قبل اختيار العتبات أو ملاءمة تصحيحات العوامل المزعجة. وبوجه خاص، يجب قياس نواتج الإصلاح المنحازة والفقد المعتمد على الحالة، أو تقييدهما، أو تغييرهما في تحليل حساسية. وينبغي عرض التقدير الرئيسي وكيفية تغيره عند تخفيف ذلك الافتراض. فالنموذج الذي لا ينجح إلا بعد اختيار قاعدة الاستبعاد الأكثر ملاءمة له يكون قد أجاب عن سؤال مختلف عن سؤال نموذج قُيّم بقاعدة مثبتة مسبقًا.
تحليل عددي محلول
عندما يكون N = 100 وM = 10,000 لسجلات موزعة بانتظام، يساوي العدد المتوقع للأزواج المتطابقة 0.495؛ وعندما يكون N = 1,000 يكون التوقع 49.95. وهذه أعداد أزواج، وليست احتمالات أو نسبًا مئوية للخلايا غير الصحيحة. وعند معدل تحرير ثابت k = 0.2 لكل وحدة زمنية اعتباطية، تبلغ النسبة غير المحررة نحو 0.368 بعد خمس وحدات. ومع فقد مستقل d = 0.1، يبلغ احتمال الاحتفاظ بجميع القراءات العشر المطلوبة نحو 0.349. وتفصل الرسوم بين نمو التصادمات وفقد سعة التسجيل الزمني.
يمكن إعادة بناء هذه الحسابات من ملف Python المرافق وجدول معلماته. وتحتفظ تسميات المحاور بوحدات النموذج، ويميّز شرح الشكل الكميات التي غُيّرت من تلك التي ثُبّتت. واختيرت الأمثلة العددية لكشف علاقة اعتماد، لا لمحاكاة مظهر شكل منشور. ومن الفحوص المستقلة المفيدة تقييم حالة حدية، ثم إعادة حساب نقطة وسيطة دون شيفرة الرسم. ويثبت التوافق صحة الحسابات ضمن النموذج المعلن؛ لكنه لا يثبت أن الطبيعة تتبع ذلك النموذج.
الأدلة والتعميم والخطوات التالية
يتحدد نطاق الاستنتاج بنواتج الإصلاح المنحازة والفقد المعتمد على الحالة. ويتطلب التعميم على مراحل تطورية جديدة أدلة تتجاوز ملاءمة المشاهدات الأصلية. وينبغي لتكرار مستقبلي أن يحفظ القياسات الخام وسجلات المعايرة والاستبعادات ورابطًا قابلًا للقراءة آليًا بين كل نتيجة والتحليل المقابل لها. ويحدد جدول الأدلة أدناه إسهام كل دراسة أولية مختارة. والمقارنة توليف سردي مركّز، وليست مراجعة منهجية أو ادعاءً بمسح جميع الأدلة اللاحقة. ولم تُنفَّذ الدراسة المقترحة هنا. وتكمن قيمتها في أن النتيجة السلبية ستقيّد تفسيرًا صريحًا، بدلًا من أن تخفض مجرد درجة معيارية.
نموذج تحليلي معلن
أربع معادلات وافتراضات صريحة
(1) تمثل H إنتروبيا السجل بوحدة البت؛ وهي مقياس للتنوع، وليست في ذاتها المعلومات المتبادلة بين السجلات والأصل السلفي.
(2) العدد المتوقع للأزواج المتطابقة عند إجراء N سحبة مستقلة منتظمة من M سجلًا؛ يتطلب الإصلاح المنحاز استبدال 1/M بمجموع مربعات احتمالات السجلات.
(3) لا تتبع النسبة غير المحررة هذه الصيغة إلا لأهداف مستقلة ذات معدل تحرير ثابت وغير عكوس k.
(4) يعطي احتمال الفقد المستقل d عبر L من القراءات المطلوبة حدًا بسيطًا للاحتفاظ؛ وتُبطل الحذوف المترابطة افتراض الاستقلال.
أمثلة مبنية · بيانات قابلة لإعادة الإنتاج
افحص الحجة الكمية
حُسبت هذه المنحنيات من النماذج المعلنة. وهي ليست مشاهدات من الدراسات المستشهد بها. ويتضمن كل شكل بياناته العددية ونسخته المتجهية.


أي الأدلة تجيب عن أي سؤال؟
| الدليل أو خيار التصميم | ما الذي يحدده | ما الذي يظل غير محسوم |
|---|---|---|
| المصدر 1 | أثبت GESTALT إمكانية استخدام تعديلات CRISPR المتراكمة سجلاتٍ للأنساب. | يقيّد التحرير المنحاز وفقد المعلومات إعادة البناء. |
| المصدر 2 | ربط scGESTALT معلومات النسب بترانسكريبتومات خلايا الدماغ المفردة. | لا تتحقق الحالة الخلوية المقاسة بصورة مستقلة من صحة شجرة الأصل السلفي بأكملها. |
| المصدر 3 | جمع LINNAEUS بين تتبّع الأنساب وترانسكريبتوميات الخلية المفردة. | يظل أخذ العينات والسجلات المفقودة جزءًا من الاستدلال. |
| الكمية الأساسية القابلة للرصد | علاقات الأصل السلفي التي تدعمها التعديلات المسجلة | نواتج الإصلاح المنحازة والفقد المعتمد على الحالة |
| اختبار مستقل | استعادة الأصل السلفي في ظل نموذج تحرير مختلف عن النموذج الملاءَم | يتطلب قياسات جديدة |
| مجموعة التعميم | مراحل تطورية جديدة | لم يتحقق منه المثال العددي المبني |
بروتوكول تحقق مقترح
هذا تصميم تقييم مقترح. ولم تُجرَ لهذا المقال أي تجربة بيولوجية جديدة أو تجربة سريرية أو تجربة فيزيائية.
- حدّد علاقات الأصل السلفي التي تدعمها التعديلات المسجلة قبل الملاءمة.
- احتفظ بمعرّفات مستقلة لكل كائن حي مستقل أو نسب معروف.
- افصل المراحل التطورية الجديدة عن تطوير النموذج.
- قِس نواتج الإصلاح المنحازة والفقد المعتمد على الحالة، أو حدّد حدودًا لهما.
- سجّل الوحدات والمعايرة ومؤثر الرصد.
- قارن النموذج الأساسي بتفسير منافس محدد بالاسم.
- حدّد الاختبار مسبقًا: استعادة الأصل السلفي في ظل نموذج تحرير مختلف عن النموذج الملاءَم.
- أرشف البيانات الخام والاستبعادات وملفات المعلمات والتحليل القابل للتنفيذ.
ما الذي تثبته المصادر الأولية
Aaron McKenna, Gregory M. Findlay, James A. Gagnon et al. · 2016 [1]
الإسهام. أثبت GESTALT إمكانية استخدام تعديلات CRISPR المتراكمة سجلاتٍ للأنساب.
حدود الدلالة. يقيّد التحرير المنحاز وفقد المعلومات إعادة البناء.
موضع المصدر. الملخص / أقسام مختارة من المصدر الأولي؛ انظر السجل الببليوغرافي المرتبط.
Bushra Raj, Daniel E Wagner, Aaron McKenna et al. · 2018 [2]
الإسهام. ربط scGESTALT معلومات النسب بترانسكريبتومات خلايا الدماغ المفردة.
حدود الدلالة. لا تتحقق الحالة الخلوية المقاسة بصورة مستقلة من صحة شجرة الأصل السلفي بأكملها.
موضع المصدر. الملخص / أقسام مختارة من المصدر الأولي؛ انظر السجل الببليوغرافي المرتبط.
Bastiaan Spanjaard, Bo Hu, Nina Mitic et al. · 2018 [3]
الإسهام. جمع LINNAEUS بين تتبّع الأنساب وترانسكريبتوميات الخلية المفردة.
حدود الدلالة. يظل أخذ العينات والسجلات المفقودة جزءًا من الاستدلال.
موضع المصدر. الملخص / أقسام مختارة من المصدر الأولي؛ انظر السجل الببليوغرافي المرتبط.
حدود هذا التحليل
- يقيّد التحرير المنحاز وفقد المعلومات إعادة البناء.
- لا تتحقق الحالة الخلوية المقاسة بصورة مستقلة من صحة شجرة الأصل السلفي بأكملها.
- يظل أخذ العينات والسجلات المفقودة جزءًا من الاستدلال.
- الأشكال المرافقة أمثلة تحليلية مبنية، وليست نتائج تجريبية جديدة.
- لم تُثبت هذه المراجعة إمكانية التعميم على مراحل تطورية جديدة.
تحليل سردي مركّز للدراسات الأولية المسماة، وليس بحثًا منهجيًا في الأدبيات أو ادعاءً بتغطية شاملة حتى 2026.
أسئلة من شأنها تغيير الاستنتاج
- ما أنماط التعديل التي تحدد فرعًا، لا خلية نهائية فحسب؟
- كيف يمكن تمييز الحذوف المترابطة من فقد الالتقاط؟
- ما الاضطرابات الناجمة عن المسجّل التي تغيّر وفرة الأنساب؟
المراجع
- Aaron McKenna, Gregory M. Findlay, James A. Gagnon et al.. Whole-organism lineage tracing by combinatorial and cumulative genome editing. Science (2016). 10.1126/science.aaf7907.
- Bushra Raj, Daniel E Wagner, Aaron McKenna et al.. Simultaneous single-cell profiling of lineages and cell types in the vertebrate brain. Nature Biotechnology (2018). 10.1038/nbt.4103.
- Bastiaan Spanjaard, Bo Hu, Nina Mitic et al.. Simultaneous lineage tracing and cell-type identification using CRISPR–Cas9-induced genetic scars. Nature Biotechnology (2018). 10.1038/nbt.4124.
جرت مطابقة الهوية الببليوغرافية مع Crossref. ويستند التفسير إلى السجلات الأولية والملخصات والنصوص المختارة المتاحة؛ ولا تشمل التغطية النصوص الكاملة والطرائق التكميلية على نحو شامل.
التأليف والمنشأ
مراجعة بحثية قائمة على المصادر وتحليل رياضي أصيل من تأليف Codex (ذكاء اصطناعي). وتعود التجارب المستشهد بها إلى فرق البحث المشار إليها.
أُنشئ الغلاف المفاهيمي بأداة ImageGen المدمجة. والأشكال الكمية تحليلات مبنية بصورة صريحة، مع شيفرة وبيانات عددية؛ وليست قياسات من الأوراق المستشهد بها.
ليس لهذه المسودة المحلية سجل مراجعة أقران مستقلة أو قبول في مجلة.