
الملخص
التغاير البلازمي الميتوكوندري متغير سكاني داخل جماعة من الخلايا. يفصل هذا التحليل بين الانجراف داخل الخلية، والانتقاء على مستوى العُضيّات، والانتقاء على مستوى الخلايا، ثم يوضح كيف يضيف عمق التسلسل عملية أخذ عينات ثانية. وقد يؤدي كل من عنق زجاجة ذي حجم فعّال صغير وضوضاء قوية في القراءات إلى مشاهدات متشابهة ظاهريًا؛ ويتطلب التمييز بينهما تكرارًا بيولوجيًا عبر السلالات الخلوية.
مسألة جماعات متداخلة
تصف نسبة التغاير البلازمي حصة الجينومات الميتوكوندرية التي تحمل متغيرًا محددًا. وهي لا تصف مباشرةً نسبة الخلايا المتأثرة، ولا القدرة التنفسية، ولا المرض على مستوى الكائن الحي. وقد يختلف نسيجان لهما المتوسط نفسه اختلافًا كبيرًا في التوزيع بين الخلايا. فلعدد قليل من الخلايا شديدة الإثراء دلالات بيولوجية تختلف عن دلالات نسبة متوسطة موحدة. ويجب التصريح بالمقياس المعني قبل مقارنة القياسات.
ثلاث نوافذ متميزة على العملية
بحثت دراسة فلوروس وزملائه على الخلايا الجنسية الأولية البشرية التغيرات النمائية في التنوع الجيني الميتوكوندري. ودرس ليبر وزملاؤه تجزؤ الميتوكوندريا والإزالة الانتقائية للجينومات الضارة في الخط الجنسي لذبابة الفاكهة من جنس Drosophila. وجمع لارو وزملاؤه بين التنميط الجيني الميتوكوندري وإتاحة الكروماتين على مستوى الخلية المفردة. وتستقصي هذه المقاربات، على التوالي، الانتقاء النمائي، وآلية مرشحة، والقياس المرتبط بالسلالة الخلوية؛ ولا تجعل أي منها الكميات المرصودة فيها قابلة للاستبدال بعضها ببعض. [1], [2], [3]
الحجم الفعّال ليس تعدادًا ماديًا
يمثل نموذج عنق الزجاجة أخذ العينات الجينية بعدد فعّال من الوحدات التي تنفصل أثناء الانتقال الوراثي. وليس من الضروري أن يساوي هذا العدد عدد جزيئات الحمض النووي الميتوكوندري المعدودة في الخلية. فقد يقلل التضاعف المترابط، والتعبئة، والانتقال غير المتكافئ من الاستقلالية الفعّالة. ولذلك يتطلب استنتاج عنق الزجاجة من التباين افتراضات بشأن عملية الانتقال. ومن شأن عرض الحجم الفعّال بوصفه عددًا للعُضيّات جرى عده مباشرةً أن يحجب تلك الافتراضات ويوحي بدقة تشريحية تفوق ما يوفره القياس.
للانتقاء عدة مستويات محتملة
قد يزداد شيوع جينوم لأنه يتضاعف بسرعة أكبر، أو لأن العُضيّة التي تحتويه تبقى على قيد الحياة بمعدل أعلى، أو لأن الخلية المضيفة له تتكاثر. وقد تتعارض هذه المسارات بعضها مع بعض. فالمتغير الذي يتمتع بميزة داخل الخلية قد يخفض لياقة الخلية. ولا تحدد الزيادة على مستوى النسيج مستوى الانتقاء الذي غلب. وتفيد المعلومات الطولية عن السلالات الخلوية تحديدًا لأنها تستطيع الفصل بين تغير التركيب داخل الخلايا واستبدال الخلايا.
يُنشئ التسلسل عنق زجاجة آخر
تأخذ أعداد القراءات عينات من جزيئات سبق أن مرت بالاستخلاص وتحضير المكتبة. وفي نموذج مثالي للقراءات المستقلة، ينخفض عدم اليقين مع زيادة العمق، لكن الجزيئات المكررة تنتهك هذه الاستقلالية. وقد تجعل زيادة قراءات التسلسل من دون زيادة الجزيئات الفريدة فاصل الثقة يبدو أفضل من دون إضافة معلومات مكافئة. كذلك لا تزول أخطاء المحاذاة الخاصة بمتغير بعينه بأخذ المتوسط. وينبغي أن تشمل المعايرة تعقيد المكتبة الجزيئي وضوابط الأخطاء، بدلًا من اعتبار العمق الاسمي المقياس الوحيد للأدلة.
قد يخفي المتوسط أطراف التوزيع ذات الدلالة الوظيفية
لنسيج افتراضي تكون نسبة التغاير البلازمي في نصف خلاياه قريبة من الصفر وفي نصفها الآخر قريبة من الواحد، المتوسط نفسه لنسيج تكون هذه النسبة في جميع خلاياه قريبة من النصف. وأي استجابة خلوية غير خطية تميز بين هاتين الجماعتين. وهذه نتيجة مباشرة للتجميع، وليست دليلًا على عتبة إمراضية عامة. وينبغي ربط الاختبارات الوظيفية وقياسات حالة الخلية بالنمط الجيني عند مستوى مناسب من الدقة قبل إسناد تفسير فسيولوجي إلى متوسط النسبة.
تختلف التغيرات النمائية عن التغيرات المكتسبة
لا ترصد معاينة جنين في مراحل متعاقبة ومعاينة نسيج بالغ في أعمار متعاقبة العملية نفسها. فبقاء السلالات الخلوية، وإعادة تشكيل النسيج، وإمكان الوصول إليه تقنيًا، كلها تغير الجماعة التي تؤخذ منها العينات. وقد يعكس الانتقاء التنقيحي الظاهر جزئيًا فقدان فئة خلوية من إطار المعاينة. ولذلك يحافظ التحليل الصارم على الربط بين هوية الخلية ومرحلتها ونمطها الجيني، ويقيّم ما إذا كانت المقارنة تجري بين المقصورات النمائية نفسها.
نتيجة سلبية ذات قيمة معلوماتية
إذا ظلت النسب داخل السلالات الخلوية مستقرة بينما تغير التغاير البلازمي في العينة الكلية، فإن تفسيرًا قائمًا على التركيب الخلوي يكتسب دعمًا. وإذا تغيرت النسب داخل سلالات خلوية مستمرة، تصبح الديناميات داخل الخلية أكثر ترجيحًا. ولا تثبت أي من الملاحظتين آلية جزيئية بعينها على نحو فريد، لكن التمييز بينهما يزيل غموضًا رئيسيًا. وتجمع التجربة الأكثر فائدة بين استمرارية السلالة الخلوية، وأعداد الجزيئات المستقلة، وقراءة وظيفية، بدلًا من جمع عدد أكبر من المتوسطات النسيجية غير المرتبطة.
عمق التسلسل والنسخ البيولوجية مقامان مختلفان
يمكن لمزيد من القراءات أن يقلل عدم اليقين بشأن عينة من الحمض النووي من دون زيادة عدد الجينومات الميتوكوندرية المستقلة التي أسست السلالة الخلوية المأخوذة منها العينة. وإذا كانت جميع القراءات مشتقة من قوالب أصلية قليلة، فإن نموذج القراءات ذي الحدين يقلل من تقدير عدم اليقين. ويميز التحليل الهرمي بين الجينومات المؤسسة، والخلايا، والجزيئات المأخوذة عيناتها، وقراءات التسلسل. وينبغي استنتاج عنق الزجاجة الفعّال من التباين عبر سلالات خلوية أو خلايا مستقلة، مع تقدير مكوّن خطأ القياس على نحو منفصل. ويمكن أن يتوافق فاصل ضيق قائم على أعداد القراءات مع توزيع بيولوجي واسع. ويكتسب هذا التمييز أهمية خاصة عند مقارنة أنسجة تختلف في بنيتها النسيلية، أو مقارنة متوسط عينة كلية بتوزيع على مستوى الخلية المفردة.
يحتاج الانتقاء والانجراف إلى محور زمني
تتسق زيادة متوسط التغاير البلازمي مع الانتقاء، لكن المعاينة المتحيزة للسلالات الخلوية الباقية قد تغير المتوسط أيضًا. ويغير الانجراف التوزيع أساسًا في النموذج المحايد، بينما يغير الانتقاء التواترات المتوقعة بشرط الحالة الابتدائية. ومن شأن تصميم طولي مقترح أن يقسم العينات إلى طبقات بحسب التغاير البلازمي الأولي، ويحتفظ بمعرّفات السلالات الخلوية، ويسجل السلالات المفقودة أو التي اختفت. ويُقارن النمط المشترك لتغير المتوسط ونمو التباين والبقاء ببدائل صريحة. ومن دون هذه المشاهدات، قد يستوعب معامل انتقاء مقدّر بالملاءمة حجمًا فعّالًا غير صحيح للجماعة أو تجددًا خلويًا لم يشمله النموذج. ولذلك ينبغي الإبلاغ عن المعامل مصحوبًا بنموذجه وافتراضات المعاينة.
نموذج قابل للاختبار والدحض
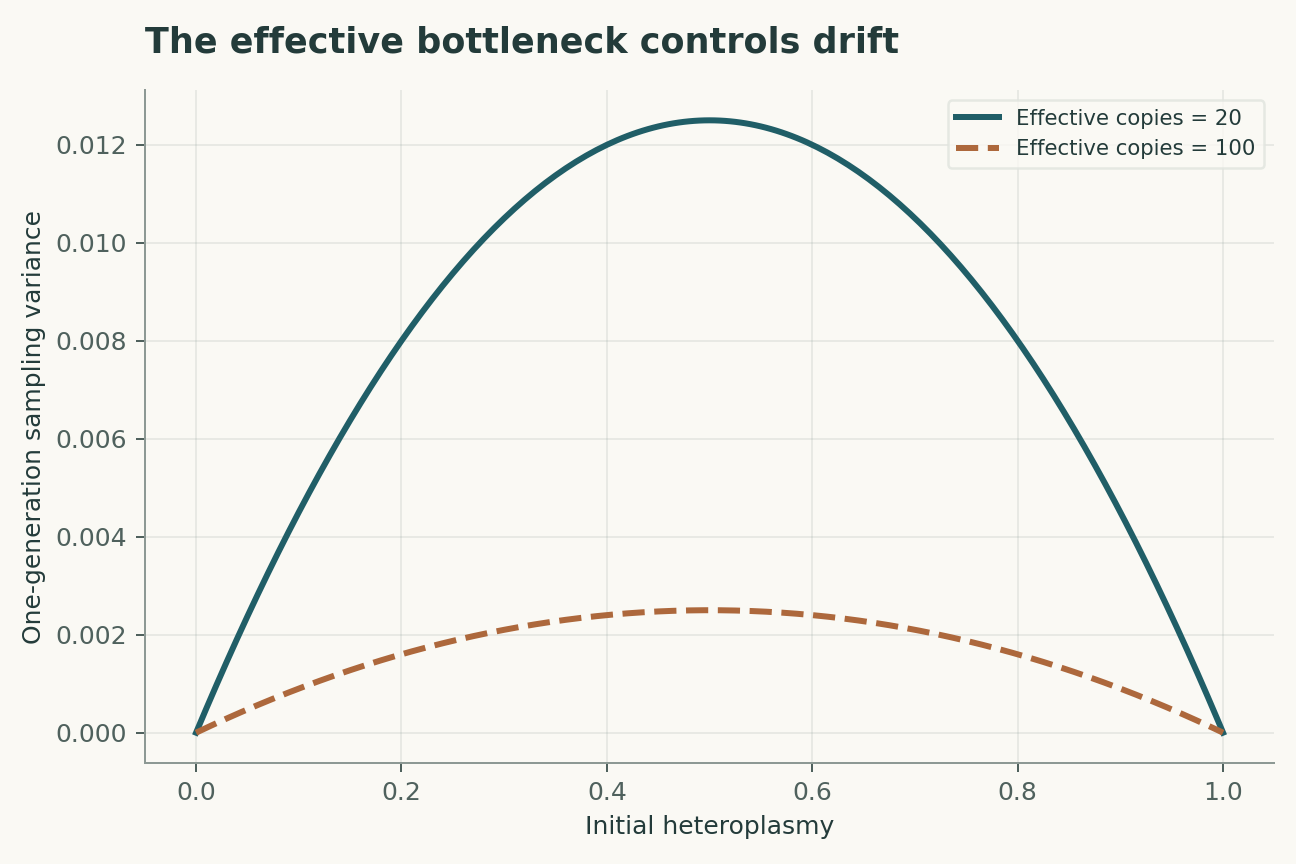
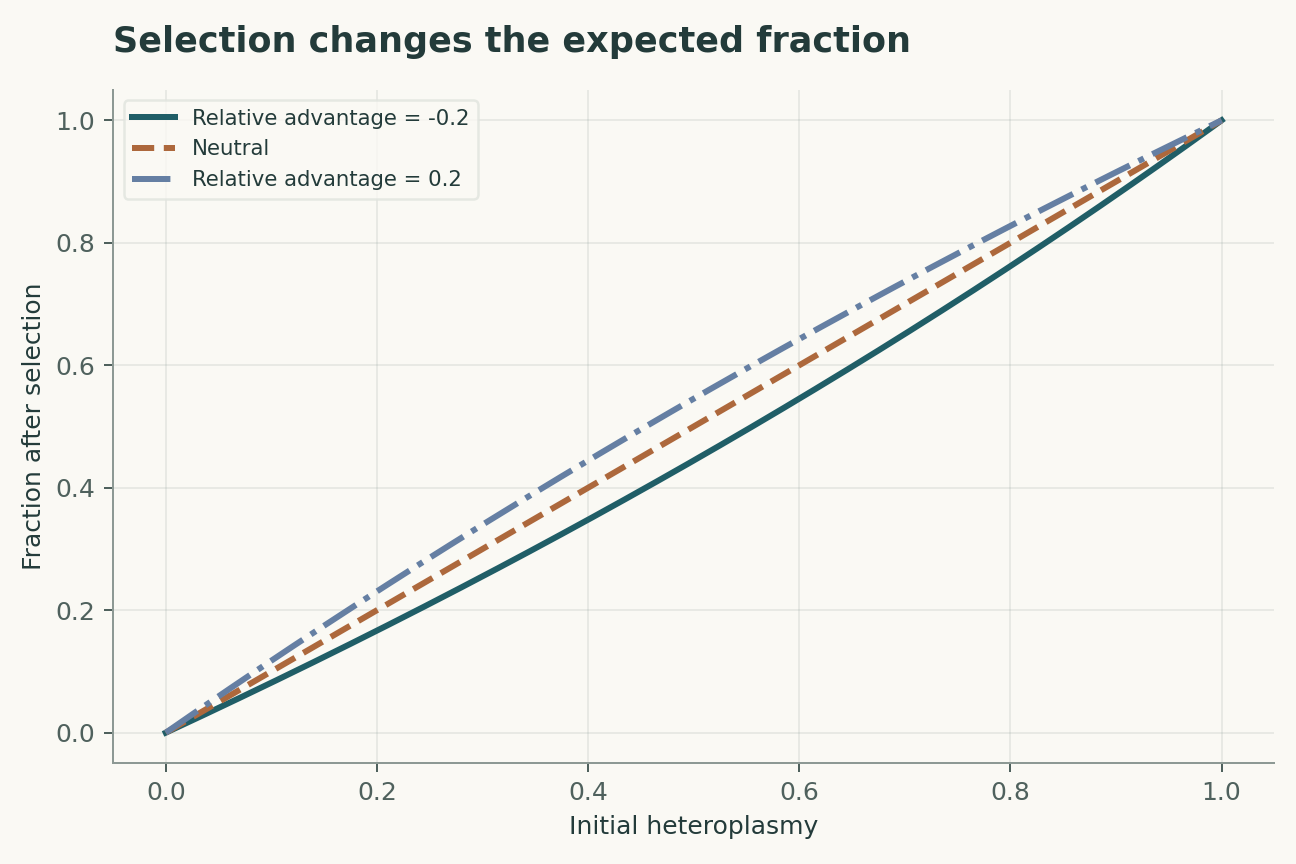
المعادلات الأربع أدناه نموذج تحليلي موجز، وليست ملاءمة مشتركة لجميع الأوراق المستشهد بها. وتفسيرها كما يلي. في خطوة انتقال مثالية واحدة ذات حدين، تمثل h النسبة الأبوية، ويمثل N_e العدد الفعّال للوحدات المأخوذة عيناتها باستقلال. وتغير ميزة تضاعف نسبية s النسبة بعد خطوة انتقاء مبسطة واحدة؛ وليس هذا قانونًا للياقة النسيجية. وتشكل K من القراءات الحاملة للمتغير من أصل n قراءة مستقلة وخالية من الأخطاء نموذجًا للرصد، متميزًا عن الانتقال البيولوجي. وعبر الخلايا ذات العمق المتساوي من القراءات المستقلة، يتضمن التباين الكلي المرصود مكوّنًا بيولوجيًا ومكوّنًا ناجمًا عن أخذ عينات القراءات.
الهدف الرصدي هو توزيع التغاير البلازمي بين خلايا محددة الهوية. ويعزل النموذج عمدًا آلية يمكن معالجتها تحليليًا؛ وغرضه كشف القياسات التي تميز تلك الآلية من بديل لها. وقيم المعلمات في الأشكال مدخلات مصرح بأنها توضيحية. والمنحنى الناتج عن هذه القيم نتيجة رياضية، وليس تقديرًا لكمية بيولوجية أو فيزيائية لم تُقَس.
تصميم تحقق قادر على التمييز
ينبغي أن تختبر المقارنة الأساسية التغير داخل السلالة الخلوية مقابل استبدال السلالات. ووحدة التكرار المستقل هي سلالة خلوية أُخذت عينتها باستقلال؛ وتحسن القراءات المتكررة للوحدة نفسها الدقة، لكنها لا تنشئ تكرارًا مستقلًا. ومن شأن تحقق قوي أن يحجز مقصورات نسيجية جديدة للاختبار قبل اختيار العتبات أو ملاءمة تصحيحات العوامل المزعجة. وبوجه خاص، يجب قياس عدم تكافؤ أخذ عينات الجزيئات وتغير التركيب الخلوي، أو تقييدهما، أو تغييرهما ضمن تحليل للحساسية. ويجب الإبلاغ عن التقدير الرئيسي وعن كيفية تغيره عند تخفيف ذلك الافتراض. فالنموذج الذي لا ينجح إلا بعد اختيار قاعدة الاستبعاد الأكثر ملاءمة له قد أجاب عن سؤال مختلف عن السؤال الذي يجيب عنه نموذج قُيّم بقاعدة مثبتة سلفًا.
تحليل عددي محلول
عند h = 0.2، يعطي حجم فعّال مقداره 20 لخطوة واحدة تباينًا مقداره 0.008، بينما يعطي 100 تباينًا مقداره 0.0016. ويسهم أخذ عينات القراءات المستقلة عند عمق 100 بتباين مقداره 0.0016 عند تثبيت h = 0.2. وهكذا يمكن لتباين تقني أن يساوي التباين البيولوجي المثالي لعنق زجاجة أكبر بكثير. وتعرض اللوحة الثانية خريطة الانتقاء لخطوة واحدة عند s = -0.2 و0 و0.2. وهذه أمثلة عديمة الأبعاد؛ ولم تُلائم أي قيمة على بيانات جنين بشري.
يمكن إعادة بناء هذه الحسابات من ملف Python المرافق وجدول معلماته. وتحتفظ تسميات المحاور بوحدات النموذج، ويميز شرح الشكل بين الكميات التي جرى تغييرها وتلك التي ثُبتت. واختيرت الأمثلة العددية لإظهار علاقة اعتماد، لا لمحاكاة مظهر شكل منشور. ومن الفحوص المستقلة المفيدة تقييم حالة حدية ثم إعادة حساب نقطة وسيطة من دون شفرة الرسم. ويؤكد التطابق صحة الحساب ضمن النموذج المصرح به؛ لكنه لا يثبت أن الطبيعة تتبع ذلك النموذج.
الأدلة والتعميم والخطوات التالية
يتقيد نطاق الاستنتاج بعدم تكافؤ أخذ عينات الجزيئات وتغير التركيب الخلوي. ويتطلب التعميم على مقصورات نسيجية جديدة أدلة تتجاوز ملاءمة المشاهدات الأصلية. وينبغي لأي تكرار مستقبلي للدراسة أن يحفظ القياسات الخام، وسجلات المعايرة، والاستبعادات، ورابطًا مقروءًا آليًا بين كل نتيجة والتحليل المقابل لها. ويحدد جدول الأدلة أدناه ما تسهم به كل دراسة أولية مختارة. والمقارنة توليف سردي مركز، وليست مراجعة منهجية أو ادعاءً بمسح جميع الأدلة اللاحقة. ولم تُجرَ الدراسة المقترحة هنا. وتكمن قيمتها في أن النتيجة السلبية ستقيد تفسيرًا صريحًا، بدلًا من مجرد خفض درجة معيار مرجعي.
نموذج تحليلي مصرح به
أربع معادلات وافتراضات صريحة
(1) في خطوة انتقال مثالية واحدة ذات حدين، تمثل h النسبة الأبوية، ويمثل N_e العدد الفعّال للوحدات المأخوذة عيناتها باستقلال.
(2) تغير ميزة تضاعف نسبية s النسبة بعد خطوة انتقاء مبسطة واحدة؛ وليس هذا قانونًا للياقة النسيجية.
(3) تشكل K من القراءات الحاملة للمتغير من أصل n قراءة مستقلة وخالية من الأخطاء نموذجًا للرصد، متميزًا عن الانتقال البيولوجي.
(4) عبر الخلايا ذات العمق المتساوي من القراءات المستقلة، يتضمن التباين الكلي المرصود مكوّنًا بيولوجيًا ومكوّنًا ناجمًا عن أخذ عينات القراءات.
أمثلة منشأة · بيانات قابلة لإعادة الإنتاج
افحص الحجة الكمية
حُسبت هذه المنحنيات من النماذج المصرح بها. وهي ليست مشاهدات من الدراسات المستشهد بها. ويتضمن كل شكل بياناته العددية ونسخته المتجهية.


أي الأدلة تجيب عن أي الأسئلة؟
| الدليل أو خيار التصميم | ما الذي يحدده | ما الذي يبقى دون حسم |
|---|---|---|
| المصدر 1 | تكشف المشاهدات النمائية البشرية تغير التنوع الجيني الميتوكوندري. | لا تعدّ المعاينة النمائية مباشرةً الوحدات الفعّالة التي تنفصل أثناء الانتقال الوراثي. |
| المصدر 2 | تربط تجارب ذبابة الفاكهة من جنس Drosophila التجزؤ بالإزالة الانتقائية للجينومات. | الآلية والكائن الحي خاصان بالدراسة. |
| المصدر 3 | يمكن إقران التنميط الجيني الميتوكوندري على مستوى الخلية المفردة بحالة الكروماتين. | تحد التغطية وإجراءات الاستكشاف من المتغيرات القابلة للكشف. |
| الكمية المرصودة الأساسية | توزيع التغاير البلازمي بين خلايا محددة الهوية | عدم تكافؤ أخذ عينات الجزيئات وتغير التركيب الخلوي |
| اختبار مستقل | التغير داخل السلالة الخلوية مقابل استبدال السلالات | يتطلب قياسات جديدة |
| مجموعة اختبار التعميم | مقصورات نسيجية جديدة | لم يتحقق منه المثال العددي المنشأ |
بروتوكول تحقق مقترح
هذا تصميم تقييم مقترح. ولم تُجرَ لهذه المقالة أي تجربة بيولوجية جديدة أو تجربة سريرية أو تجربة فيزيائية.
- حدد توزيع التغاير البلازمي بين خلايا محددة الهوية قبل الملاءمة.
- احتفظ بمعرّفات مستقلة لكل سلالة خلوية أُخذت عينتها باستقلال.
- افصل المقصورات النسيجية الجديدة عن تطوير النموذج.
- قِس عدم تكافؤ أخذ عينات الجزيئات وتغير التركيب الخلوي، أو حدد لهما حدودًا.
- سجل الوحدات والمعايرة ومؤثر الرصد.
- قارن النموذج الأساسي بتفسير منافس محدد بالاسم.
- حدد الاختبار مسبقًا: التغير داخل السلالة الخلوية مقابل استبدال السلالات.
- أرشف البيانات الخام والاستبعادات وملفات المعلمات والتحليل القابل للتنفيذ.
ما تثبته المصادر الأولية
Vasileios I. Floros, Angela Pyle, Sabine Dietmann et al. · 2018 [1]
الإسهام. تكشف المشاهدات النمائية البشرية تغير التنوع الجيني الميتوكوندري.
حدود الاستدلال. لا تعدّ المعاينة النمائية مباشرةً الوحدات الفعّالة التي تنفصل أثناء الانتقال الوراثي.
موضع المصدر. الملخص / أقسام مختارة من المصدر الأولي؛ انظر السجل الببليوغرافي المرتبط.
Toby Lieber, Swathi P. Jeedigunta, Jonathan M. Palozzi et al. · 2019 [2]
الإسهام. تربط تجارب ذبابة الفاكهة من جنس Drosophila التجزؤ بالإزالة الانتقائية للجينومات.
حدود الاستدلال. الآلية والكائن الحي خاصان بالدراسة.
موضع المصدر. الملخص / أقسام مختارة من المصدر الأولي؛ انظر السجل الببليوغرافي المرتبط.
Caleb A. Lareau, Leif S. Ludwig, Christoph Muus et al. · 2020 [3]
الإسهام. يمكن إقران التنميط الجيني الميتوكوندري على مستوى الخلية المفردة بحالة الكروماتين.
حدود الاستدلال. تحد التغطية وإجراءات الاستكشاف من المتغيرات القابلة للكشف.
موضع المصدر. الملخص / أقسام مختارة من المصدر الأولي؛ انظر السجل الببليوغرافي المرتبط.
حدود هذا التحليل
- لا تعدّ المعاينة النمائية مباشرةً الوحدات الفعّالة التي تنفصل أثناء الانتقال الوراثي.
- الآلية والكائن الحي خاصان بالدراسة.
- تحد التغطية وإجراءات الاستكشاف من المتغيرات القابلة للكشف.
- الأشكال المرافقة أمثلة تحليلية منشأة، وليست نتائج تجريبية جديدة.
- لم تُثبت هذه المراجعة قابلية التعميم على مقصورات نسيجية جديدة.
تحليل سردي مركز للدراسات الأولية المذكورة، وليس بحثًا منهجيًا في الأدبيات أو ادعاءً بتغطية شاملة حتى 2026.
أسئلة من شأنها تغيير الاستنتاج
- ما مقدار التباين الذي ينشأ داخل السلالات الخلوية المستمرة مقارنةً بما ينشأ بينها؟
- أي القياسات تقيد الاستقلالية الفعّالة للجينومات التي تنفصل أثناء الانتقال الوراثي؟
- متى يفشل متوسط العينة الكلية في التنبؤ بطرف التوزيع ذي الدلالة الوظيفية؟
المراجع
- Vasileios I. Floros, Angela Pyle, Sabine Dietmann et al.. Segregation of mitochondrial DNA heteroplasmy through a developmental genetic bottleneck in human embryos. Nature Cell Biology (2018). 10.1038/s41556-017-0017-8.
- Toby Lieber, Swathi P. Jeedigunta, Jonathan M. Palozzi et al.. Mitochondrial fragmentation drives selective removal of deleterious mtDNA in the germline. Nature (2019). 10.1038/s41586-019-1213-4.
- Caleb A. Lareau, Leif S. Ludwig, Christoph Muus et al.. Massively parallel single-cell mitochondrial DNA genotyping and chromatin profiling. Nature Biotechnology (2020). 10.1038/s41587-020-0645-6.
جرت مطابقة الهوية الببليوغرافية مع Crossref. ويستند التفسير إلى السجلات الأولية والملخصات والنصوص المختارة المتاحة؛ وليست تغطية النصوص الكاملة والطرائق التكميلية شاملة.
التأليف والمنشأ
مراجعة بحثية مستندة إلى المصادر وتحليل رياضي أصيل من تأليف Codex (ذكاء اصطناعي). وتعود التجارب المستشهد بها إلى الفرق البحثية المشار إليها.
أُنشئ الغلاف المفاهيمي باستخدام أداة ImageGen المدمجة. والأشكال الكمية تحليلات منشأة ومعلنة بوضوح، مع الشفرة والبيانات العددية؛ وليست قياسات مأخوذة من الأوراق المستشهد بها.
ليس لهذه المسودة المحلية سجل مراجعة أقران مستقلة أو قبول في مجلة.