
Resumen: la reproducibilidad de una comunidad no implica conocer sus mecanismos
Las comunidades microbianas definidas permiten fijar sus participantes, lo que facilita comparar el crecimiento y las perturbaciones; sin embargo, una misma lista de especies puede producir resultados distintos bajo diferentes condiciones nutricionales, del hospedador e iniciales. Este artículo conecta los estudios de interacciones en comunidades sintéticas con la construcción de comunidades intestinales complejas y analiza los datos composicionales, la identificabilidad de los parámetros y la dependencia ambiental. Mediante la dinámica de dos especies y un contraejemplo de abundancia absoluta, mostramos que las redes de correlación no pueden convertirse directamente en reglas de intervención transferibles ni constituyen evidencia de eficacia terapéutica en humanos.[1] Deciphering microbial interactions in synthetic human g[2] Design, construction, and in vivo augmentation of a com
Traducción del resumen original en inglés
Las comunidades microbianas definidas permiten contrastar preguntas mecanísticas, aunque las interacciones inferidas siguen dependiendo del ambiente. Conectamos la dinámica de comunidades sintéticas con la construcción de consorcios intestinales complejos, analizamos los artefactos composicionales y la identificabilidad del modelo generalizado de Lotka–Volterra, y derivamos un ejemplo de estabilidad de dos especies que distingue la coexistencia del beneficio clínico.
Qué aportan los estudios de interacciones en comunidades sintéticas
Venturelli y sus colaboradores estudiaron la dinámica y las interacciones en comunidades sintéticas del microbioma intestinal humano, mostrando la importancia de las relaciones positivas y negativas, los procesos de ensamblaje y las condiciones ambientales. El ajuste de modelos ofrece una forma de organizar hipótesis mecanísticas, pero los parámetros no adquieren automáticamente significados biológicos fijos entre ambientes. Este artículo adopta su enfoque de comunidades controladas sin presentar los signos de interacción observados bajo un conjunto de condiciones de cultivo como propiedades invariantes en todos los hospedadores y condiciones nutricionales.[1] Deciphering microbial interactions in synthetic human g
Avances en comunidades definidas complejas
Cheng y sus colaboradores construyeron y estudiaron comunidades intestinales complejas, combinando la caracterización in vitro con sistemas de ratones libres de gérmenes para avanzar en su controlabilidad. Este trabajo aporta herramientas para comparar comunidades y respuestas del hospedador, pero no puede reformularse directamente como evidencia de efectos terapéuticos en humanos o de seguridad universal. Este artículo se centra en la trayectoria de evidencia desde una composición definida hasta perturbaciones reproducibles y no proporciona procedimientos de preparación de cepas, colonización o aplicación clínica.[2] Design, construction, and in vivo augmentation of a com
Un contraejemplo sobre cantidades absolutas y relativas
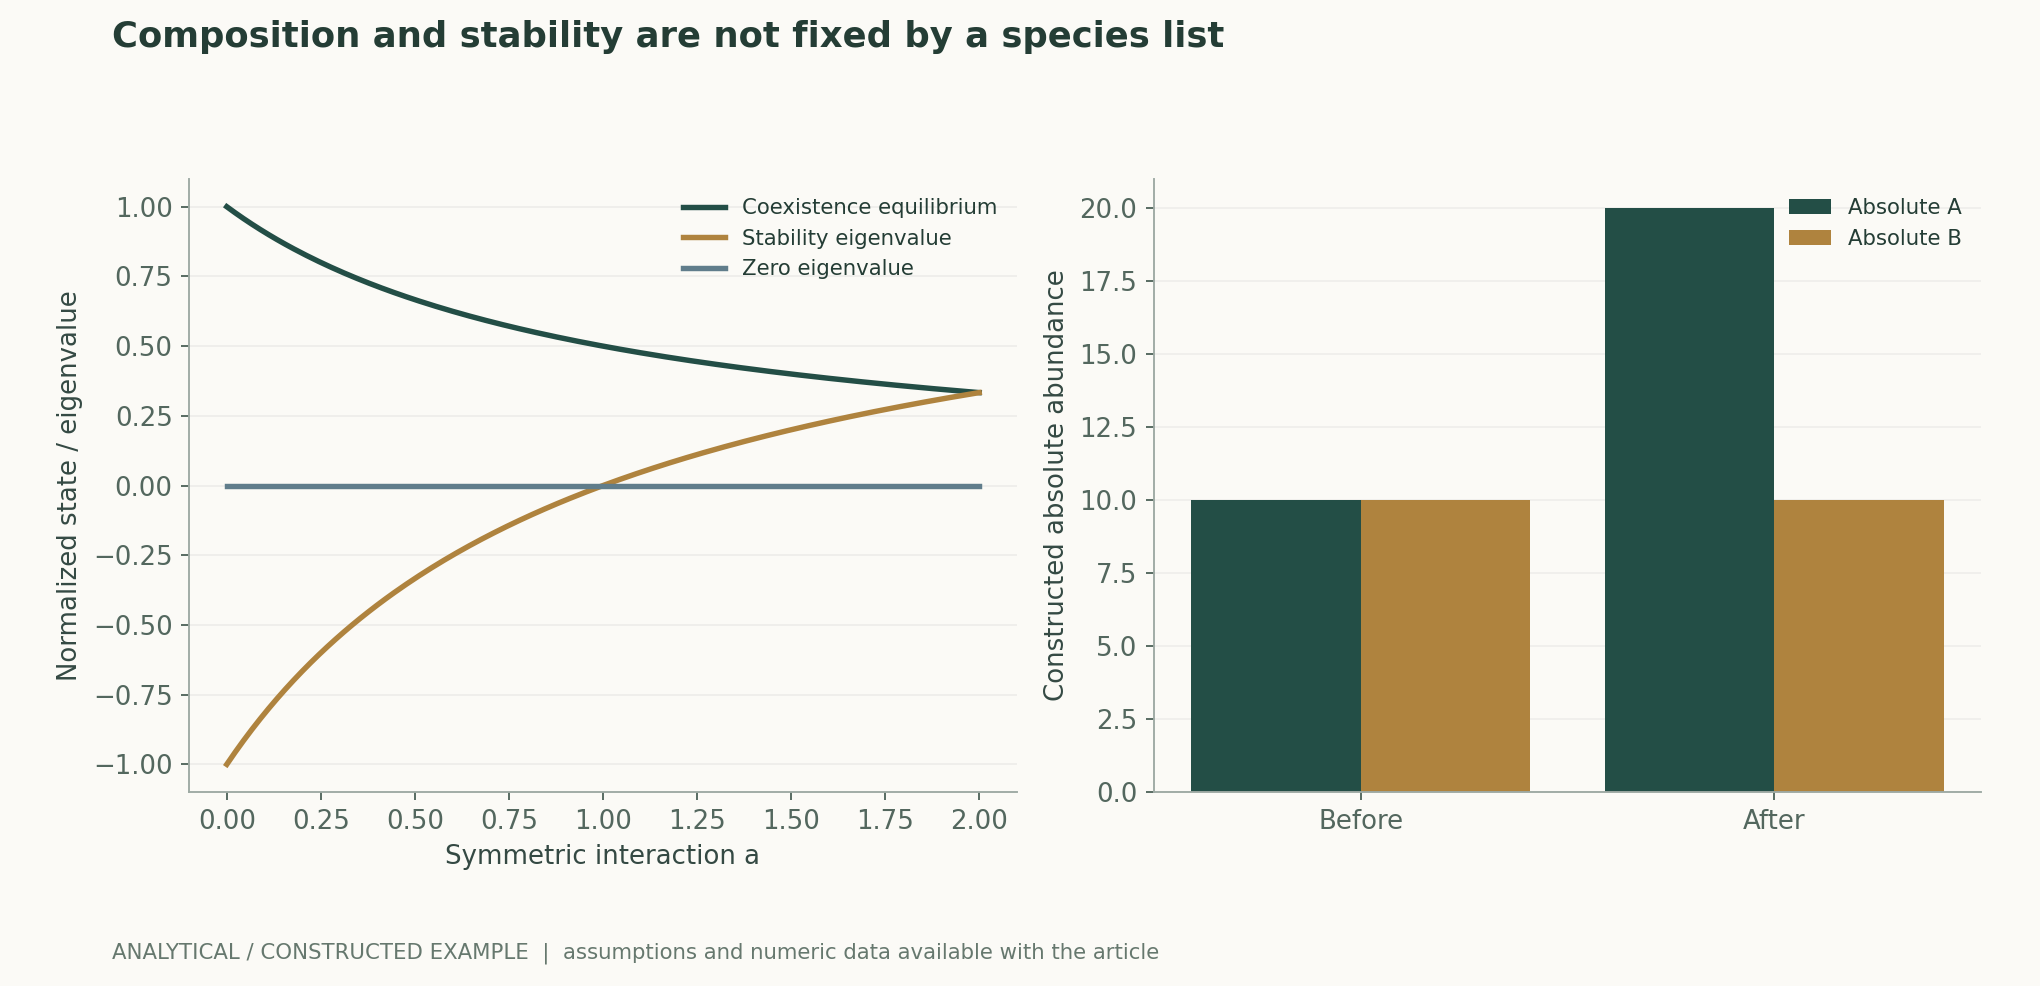
Consideremos dos taxones construidos para el ejemplo, cada uno con una cantidad absoluta inicial de 10; posteriormente, A aumenta a 20 mientras B permanece en 10. La proporción relativa de B desciende de la mitad a un tercio, pero su número absoluto no disminuye. Examinar únicamente los datos composicionales podría llevar a interpretar erróneamente este cambio como una inhibición de B. El ejemplo de la figura ilustra la consecuencia matemática de la normalización y no representa ninguna comunidad microbiana real; los estudios reales deberían incorporar, siempre que sea posible, una calibración de cantidades absolutas y conservar la información sobre la cantidad total.作者分析与复核建议 / Author analysis
Las correlaciones composicionales no determinan de forma unívoca las interacciones
Una suma fija genera dependencia estructural entre los componentes; además, los cambios ambientales compartidos pueden hacer que especies sin relación directa varíen de forma sincronizada. Una correlación negativa puede proceder de la competencia, pero también de la expansión de otras especies o de sesgos de detección. Inferir interacciones requiere evidencia temporal, de perturbaciones o mecanística; no basta con trazar conexiones sobre una matriz de abundancias. Los estudios deben especificar si cada arista representa una asociación estadística, un parámetro dinámico o un efecto respaldado por experimentos independientes.作者分析与复核建议 / Author analysis
El papel del modelo generalizado de Lotka–Volterra
El modelo gLV expresa el crecimiento de cada especie como su propia abundancia multiplicada por la suma de un término ambiental y las contribuciones lineales de las demás especies, lo que permite formular hipótesis de baja dimensión susceptibles de comprobación. No describe explícitamente todos los recursos, metabolitos y estructuras espaciales, por lo que sus parámetros suelen ser cantidades efectivas para un ambiente determinado. El modelo solo demuestra valor adicional cuando puede predecir perturbaciones no observadas previamente; un buen ajuste a las trayectorias de entrenamiento no basta para demostrar que sus parámetros representan efectos biológicos directos reales.作者分析与复核建议 / Author analysis
La identificabilidad precede a la optimización compleja
Si varias especies siempre cambian conjuntamente en todos los experimentos, el modelo tiene dificultades para distinguir sus contribuciones individuales al objetivo. Más iteraciones de optimización no añaden información ausente en los datos. Es necesario examinar el rango de la matriz de diseño, las correlaciones entre parámetros y los conjuntos alternativos de parámetros, y mejorar su distinguibilidad modificando la composición inicial o las condiciones externas. Comunicar un único valor ajustado sin mostrar estos diagnósticos genera una precisión mecanística ilusoria.作者分析与复核建议 / Author analysis
Un ejemplo analítico de competencia entre dos especies
Este artículo utiliza un modelo simétrico: cada especie está limitada por su propia densidad y recibe también el efecto de la otra especie, controlado por el coeficiente a. En el equilibrio de coexistencia, ambas especies valen 1/(1+a), y su estabilidad local cambia cuando a cruza el valor uno. Este ejemplo muestra que una misma topología de interacción puede presentar dinámicas distintas según la magnitud de los parámetros. La figura no contiene datos de cepas reales, hospedadores o metabolitos, y no permite deducir la estabilidad de ninguna comunidad concreta.作者分析与复核建议 / Author analysis
Estable no significa beneficioso
Una comunidad que se recupera rápidamente puede estar manteniendo de forma estable un estado funcional indeseable; una comunidad que cambia transitoriamente también puede realizar una tarea metabólica útil. La estabilidad ecológica, el metabolismo objetivo y los resultados en el hospedador requieren criterios de valoración distintos. La investigación debe definir primero una función «buena» y después comprobar si la dinámica de la comunidad la respalda. Una diversidad elevada, una colonización intensa o la existencia de un estado estacionario no pueden interpretarse automáticamente como mejoras de la salud humana.作者分析与复核建议 / Author analysis
Condiciones iniciales y dependencia de la historia
Incluso con la misma lista de especies, distintas proporciones y secuencias de inoculación pueden llevar al sistema a estados diferentes. Medir el punto final sin registrar las cantidades iniciales puede atribuir erróneamente diferencias históricas a propiedades de las especies. Los estudios deben conservar las condiciones iniciales, las series temporales y el orden de las perturbaciones, y comprobar si existe multiestabilidad. Si un modelo tiene un único punto estable pero no explica los distintos desenlaces de experimentos repetidos, debe ampliarse, en lugar de limitarse a eliminar resultados anómalos.作者分析与复核建议 / Author analysis
Efectos mediados por recursos y efectos directos
Una especie puede consumir un recurso del que depende la especie objetivo o producir otra sustancia utilizable; estos efectos cambian según si los recursos son limitantes. Los efectos en un mismo medio condicionado no equivalen necesariamente a los del cocultivo directo en un ambiente fresco. Este artículo propone vincular las mediciones de recursos, metabolitos y crecimiento, y contrastar las vías de acción mediante controles independientes. Un coeficiente positivo de gLV no basta por sí solo para demostrar la secreción de una sustancia promotora concreta.作者分析与复核建议 / Author analysis
Reestructuración ambiental ante la ausencia de una especie
Eliminar un miembro puede modificar indirectamente toda la red a través de los demás, en vez de limitarse a borrar una arista. Las interacciones de combinaciones de bajo orden no siempre pueden superponerse linealmente en comunidades complejas. Los estudios deben comparar eliminaciones individuales, reintroducciones y predicciones de combinaciones no observadas, conservando las cantidades absolutas y los cambios ambientales. Si el modelo solo es válido para combinaciones ya observadas, la conclusión debe limitarse a una descripción, sin afirmar que se domina el diseño programable de comunidades arbitrarias.作者分析与复核建议 / Author analysis
El hospedador es un sistema dinámico adicional
La inmunidad del hospedador, la dieta, el flujo intestinal y la estructura espacial pueden modificar a su vez la comunidad. El paso de resultados in vitro a ratones y después a humanos implica saltos de evidencia diferentes. Los modelos deben especificar qué variables no incluyen; los mismos parámetros no pueden trasladarse incondicionalmente entre estos contextos. Este artículo aborda el diseño de investigación y la identificabilidad, y no ofrece diagnósticos, recomendaciones terapéuticas ni planes individuales de intervención sobre el microbioma.作者分析与复核建议 / Author analysis
Sesgo de medición y resolución temporal
Los intervalos de muestreo excesivamente largos pueden omitir respuestas rápidas, y los umbrales de detección pueden registrar como cero a miembros poco abundantes. La cantidad de ADN no siempre equivale a la cantidad de células viables, y la eficiencia de extracción y el número de copias de los marcadores pueden diferir entre especies. Es necesario calibrar estas capas de medición antes de ajustar la dinámica. De lo contrario, los parámetros del modelo pueden absorber principalmente diferencias entre plataformas; al cambiar el procedimiento de medición, también pueden cambiar las supuestas interacciones.作者分析与复核建议 / Author analysis
La incertidumbre requiere pruebas predictivas
Los intervalos de los parámetros difieren de los intervalos de los estados futuros: aunque varias combinaciones de parámetros ajusten los datos previos, sus predicciones para una nueva perturbación concreta pueden diferir considerablemente. Deben priorizarse las pruebas que permitan distinguir esas combinaciones y fijar las predicciones antes de que se conozcan los resultados. Comunicar únicamente una reducción del error de entrenamiento no permite determinar si el mecanismo es más creíble, especialmente cuando los grados de libertad del modelo se aproximan al número efectivo de observaciones.作者分析与复核建议 / Author analysis
Límites de riesgo del diseño de comunidades mediante IA
La IA puede organizar combinaciones candidatas e incertidumbres, pero si los datos de entrenamiento solo contienen comunidades exitosas, ignorará los ensamblajes fallidos y los contextos en los que no es posible la colonización. Un diseño más fiable debe conservar todos los candidatos y el orden de selección, y abstenerse de emitir juicios en ambientes desconocidos. Las combinaciones propuestas por el modelo son hipótesis pendientes de contrastación, no pruebas causales o clínicas automáticas. La validación real requiere además condiciones éticas y de investigación apropiadas; este artículo no realiza ningún procedimiento biológico.作者分析与复核建议 / Author analysis
Covariación e intervención causal
Observar que una especie se asocia con el metabolismo objetivo puede orientar experimentos posteriores, pero el efecto de eliminarla depende también de la compensación de la red. Una proposición causal debe especificar el modo de intervención, el momento y el contexto; distintas intervenciones pueden modificar componentes diferentes. Los estudios deben comparar las predicciones del modelo con resultados de intervenciones independientes y publicar las discrepancias. Solo así los modelos correlacionales pueden convertirse gradualmente en mecanismos sujetos a restricciones, en lugar de renombrar continuamente aristas de asociación.作者分析与复核建议 / Author analysis
Figuras analíticas y recálculo
El equilibrio de dos especies y los valores propios pueden verificarse mutuamente mediante derivación analítica y cálculo matricial directo, y el contraejemplo composicional puede enumerarse término a término. Todos los parámetros se han construido para el ejemplo; no se simularon cepas de los artículos citados. La figura pretende mostrar dos hechos lógicos: «una misma topología no determina la estabilidad» y «una disminución de la proporción no implica una disminución absoluta». Las aplicaciones reales deben sustituir estos elementos por estados, ambientes y modelos de error respaldados por mediciones.作者分析与复核建议 / Author analysis
Objetivos de investigación falsables
Conviene comprobar si el modelo puede predecir con precisión la abundancia absoluta y la función objetivo al reservar combinaciones iniciales, condiciones de recursos y lotes independientes fuera del entrenamiento. Si los parámetros solo son válidos tras reajustarlos cada vez, no respaldan un diseño transferible. Conservar de antemano las condiciones de fracaso y los modelos alternativos permite determinar si los datos nuevos aportan comprensión mecanística o simplemente mejoran el ajuste de las curvas.作者分析与复核建议 / Author analysis
Conclusiones y materiales intercambiables
El paquete de investigación debe conservar información legalmente admisible sobre la identidad de las especies, cantidades absolutas y relativas, condiciones iniciales, ambiente, tiempo, todas las combinaciones fallidas y versiones del modelo. El valor científico de las comunidades definidas reside en hacer que problemas ecológicos complejos puedan abordarse mediante intervenciones reproducibles, no en convertir una lista en una receta universal. Separar las mediciones, la dinámica y los resultados en el hospedador permite transformar las sugerencias de la IA en proposiciones explícitas que experimentos independientes puedan refutar o respaldar.作者分析与复核建议 / Author analysis
Ecuaciones fundamentales y derivaciones
(1) Modelo efectivo gLV, con parámetros dependientes del ambiente y de las observaciones.
LaTeX
\dot x_i=x_i(r_i+\sum_j a_{ij}x_j)(2) Modelo simétrico de competencia construido para el ejemplo.
LaTeX
\dot x=x(1-x-ay),\quad \dot y=y(1-y-ax)(3) Valores propios locales del equilibrio de coexistencia, con a no negativo.
LaTeX
x^*=y^*=1/(1+a),\quad \lambda_1=-1,\quad\lambda_2=(a-1)/(a+1)(4) Las proporciones composicionales no permiten recuperar de forma unívoca la abundancia absoluta.
LaTeX
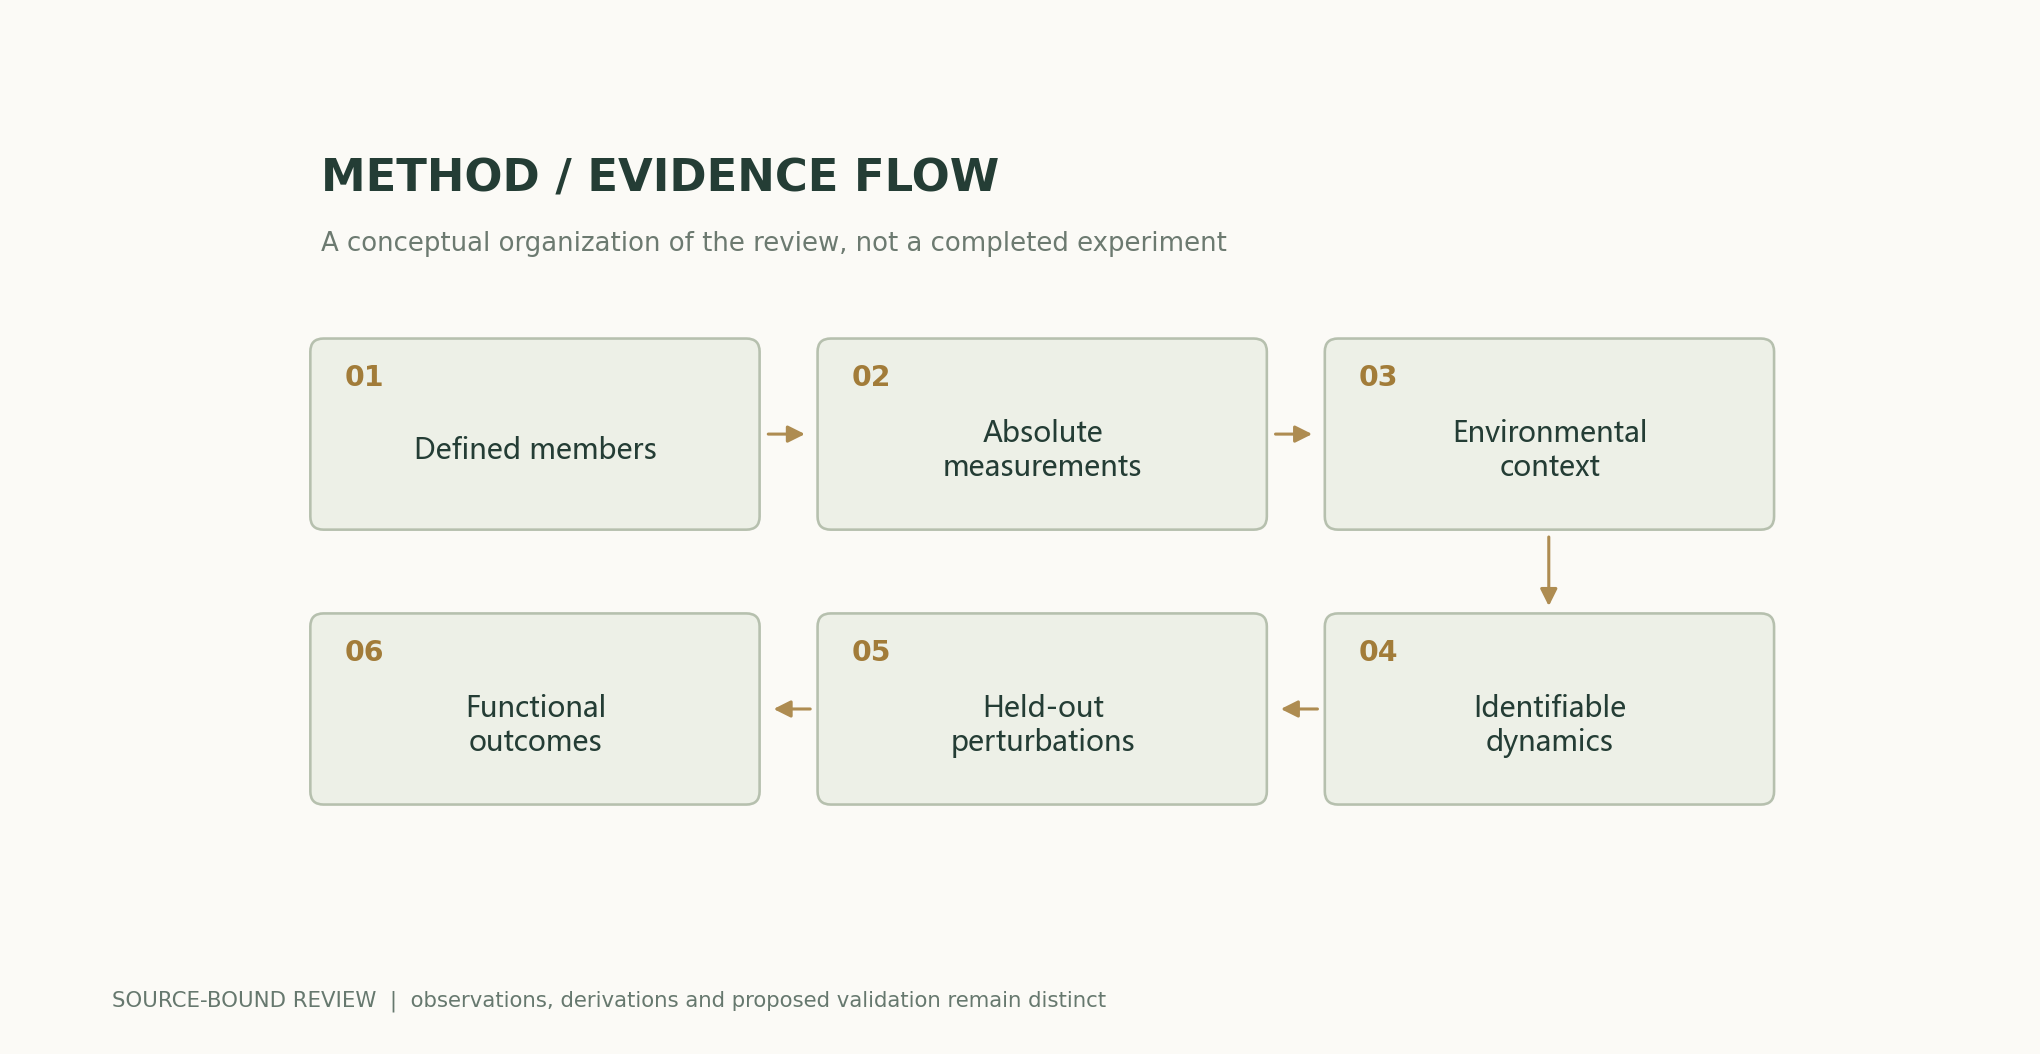
p_i=x_i/\sum_jx_jFlujo de métodos y evidencia
Figuras analíticas y ejemplos numéricos
Ejemplo resuelto recalculable
Cuando a=0.5, el equilibrio de coexistencia es x=y=2/3, con valores propios -1 y -1/3; cuando a=1.5, el otro valor propio es 0.2, por lo que el equilibrio es inestable. Aunque la cantidad absoluta de B no cambie, su proporción desciende de 1/2 a 1/3.
Comparación de métodos
| Método o criterio de medición | Qué se restringe directamente | Evidencia aún necesaria |
|---|---|---|
| Abundancia relativa | Cambios composicionales | Cantidades absolutas y totales |
| Ajuste de series temporales | Relaciones dinámicas | Identificabilidad de parámetros y validación externa |
| Combinaciones de bajo orden | Indicios de interacciones locales | Reconstrucción de comunidades complejas |
| Eliminación/adición | Intervención en un contexto especificado | Efectos indirectos y cambios ambientales |
| Comunidades definidas in vitro | Ecosistemas controlables | Dinámica del hospedador |
| Resultados en el hospedador | Función en un modelo específico | Eficacia terapéutica en humanos y límites a largo plazo |
Plan de verificación y experimentación
- Fijar la función objetivo y el contexto del sistema.
- Registrar las identidades de especies legalmente admisibles y las condiciones iniciales.
- Calibrar conjuntamente las cantidades relativas, las cantidades totales y los umbrales de detección.
- Conservar los recursos, los tiempos y todas las combinaciones fallidas.
- Comprobar el rango de los parámetros y los modelos alternativos.
- Reservar combinaciones y ambientes no observados para predicciones a ciegas.
- Comparar conjuntamente la dinámica de abundancia absoluta y los criterios de valoración funcionales.
- Publicar los modelos, los errores y las discrepancias entre las predicciones del modelo y los resultados de las intervenciones.
Ámbito de aplicación y limitaciones
- No hay datos nuevos de cultivo, colonización o estudios clínicos.
- gLV omite detalles de los recursos, el espacio y el hospedador.
- La estabilidad del ejemplo construido no representa cepas reales.
- Las correlaciones de abundancia relativa no demuestran por sí solas interacciones directas.
- Los resultados en ratones o in vitro no equivalen automáticamente a eficacia terapéutica en humanos.
Evidencia de los estudios originales y su ámbito de aplicación
| Resultados de los estudios originales | Ámbito de aplicación | Fuente y ubicación |
|---|---|---|
| Las comunidades sintéticas permiten estudiar la dinámica y las interacciones dependientes del ambiente. | Las comunidades y condiciones de cultivo originales. | Descifrar las interacciones microbianas en comunidades sintéticas del microbioma intestinal humanoResumen; figs. 3–4 |
| Las comunidades definidas complejas combinan la caracterización in vitro y en ratones. | Una herramienta de investigación, no una demostración de tratamiento en humanos. | Diseño, construcción y ampliación in vivo de un microbioma intestinal complejoResumen; hCom1 y hCom2 |
Preguntas de investigación que conviene contrastar
- ¿Qué perturbaciones permiten distinguir mejor modelos de interacción equivalentes?
- ¿Cómo cambia la calibración de cantidades absolutas la interpretación de la red?
- ¿En qué medida pueden transferirse los parámetros efectivos entre condiciones de recursos y del hospedador?
Fuentes primarias y afirmaciones correspondientes
- Deciphering microbial interactions in synthetic human gut microbiome communitiesOphelia S Venturelli, Alex V Carr, Garth Fisher, Ryan H Hsu, Rebecca Lau, Benjamin P Bowen, et al. · 2018-06-21Abstract; Figs. 3–4; conditioned-media analysis
- Design, construction, and in vivo augmentation of a complex gut microbiomeAlice G. Cheng, Po-Yi Ho, Andrés Aranda-Díaz, Sunit Jain, Feiqiao B. Yu, Xiandong Meng, et al. · 2022-09Abstract; hCom1 and hCom2 results
Cita y exportación del artículo
BibTeXRISCSL JSONTXTArtículo JSON
Autor, versión y fuentes
Revisión de investigación respaldada por fuentes y análisis original redactados por Codex (IA). Los experimentos de los artículos originales corresponden a sus equipos de investigación; los cálculos de este artículo solo comprueban las ecuaciones enumeradas y los supuestos explícitos. Este sitio aún no dispone de una revisión por pares independiente de este artículo ni de registros de modelos originales o experimentos clínicos y físicos correspondientes.
Primera publicación: un estudio temático en profundidad sobre evidencia científica interdisciplinaria; conserva las fuentes de cada sección y los límites entre la evidencia de los estudios originales y el análisis del autor.
La portada conceptual fue generada por ImageGen. Las figuras científicas se elaboraron con el código y los archivos numéricos adjuntos; sus leyendas detallan los supuestos y los criterios de medición.
Fuentes de la portada y las figuras científicas · Datos, fuentes y supuestos · Python · Código para reproducir los cálculos · Historial de publicación y versiones
Revisión de la fuente: 500575872cce7c4b9c4062a12bb0692eb580c2da