
摘要:群落可重复不等于机制已知
定义微生物群落能够固定参与者,使生长和扰动更容易比较,但同一菌种列表在不同营养、宿主和初始条件下仍可能产生不同结果。本文连接合成群落互作研究与复杂肠道群落构建,分析组成数据、参数可辨识性和环境依赖。我们用两物种动力学与绝对丰度反例,说明相关网络不能直接变成可迁移干预规则,也不构成人体疗效证据。[1] Deciphering microbial interactions in synthetic human g[2] Design, construction, and in vivo augmentation of a com
English abstract
Defined microbial communities make mechanistic questions testable, yet inferred interactions remain environment dependent. We connect synthetic-community dynamics with complex gut-consortium construction, analyze compositional artifacts and generalized Lotka–Volterra identifiability, and derive a two-species stability example separating coexistence from clinical benefit.
合成互作研究提供什么
Venturelli等在合成人类肠道微生物群落中研究动态与互作,展示正负关系、组装过程和环境条件的重要性。模型拟合为机制假说提供组织方式,但参数并不自动具有跨环境的固定生物学含义。本文采用其受控群落思路,不把一组培养条件中的相互作用符号写成所有宿主和营养条件下不变的属性。[1] Deciphering microbial interactions in synthetic human g
复杂定义群落的进展
Cheng等构建并研究复杂肠道群落,结合体外表征与无菌小鼠体系推进可控性。该工作为比较群落和宿主反应提供了工具,不能直接改写为人体治疗效果或普遍安全性。本文关注从明确组成到可重复扰动的证据路径,不提供菌株制备、定植或临床应用操作。[2] Design, construction, and in vivo augmentation of a com
绝对量与相对量的反例
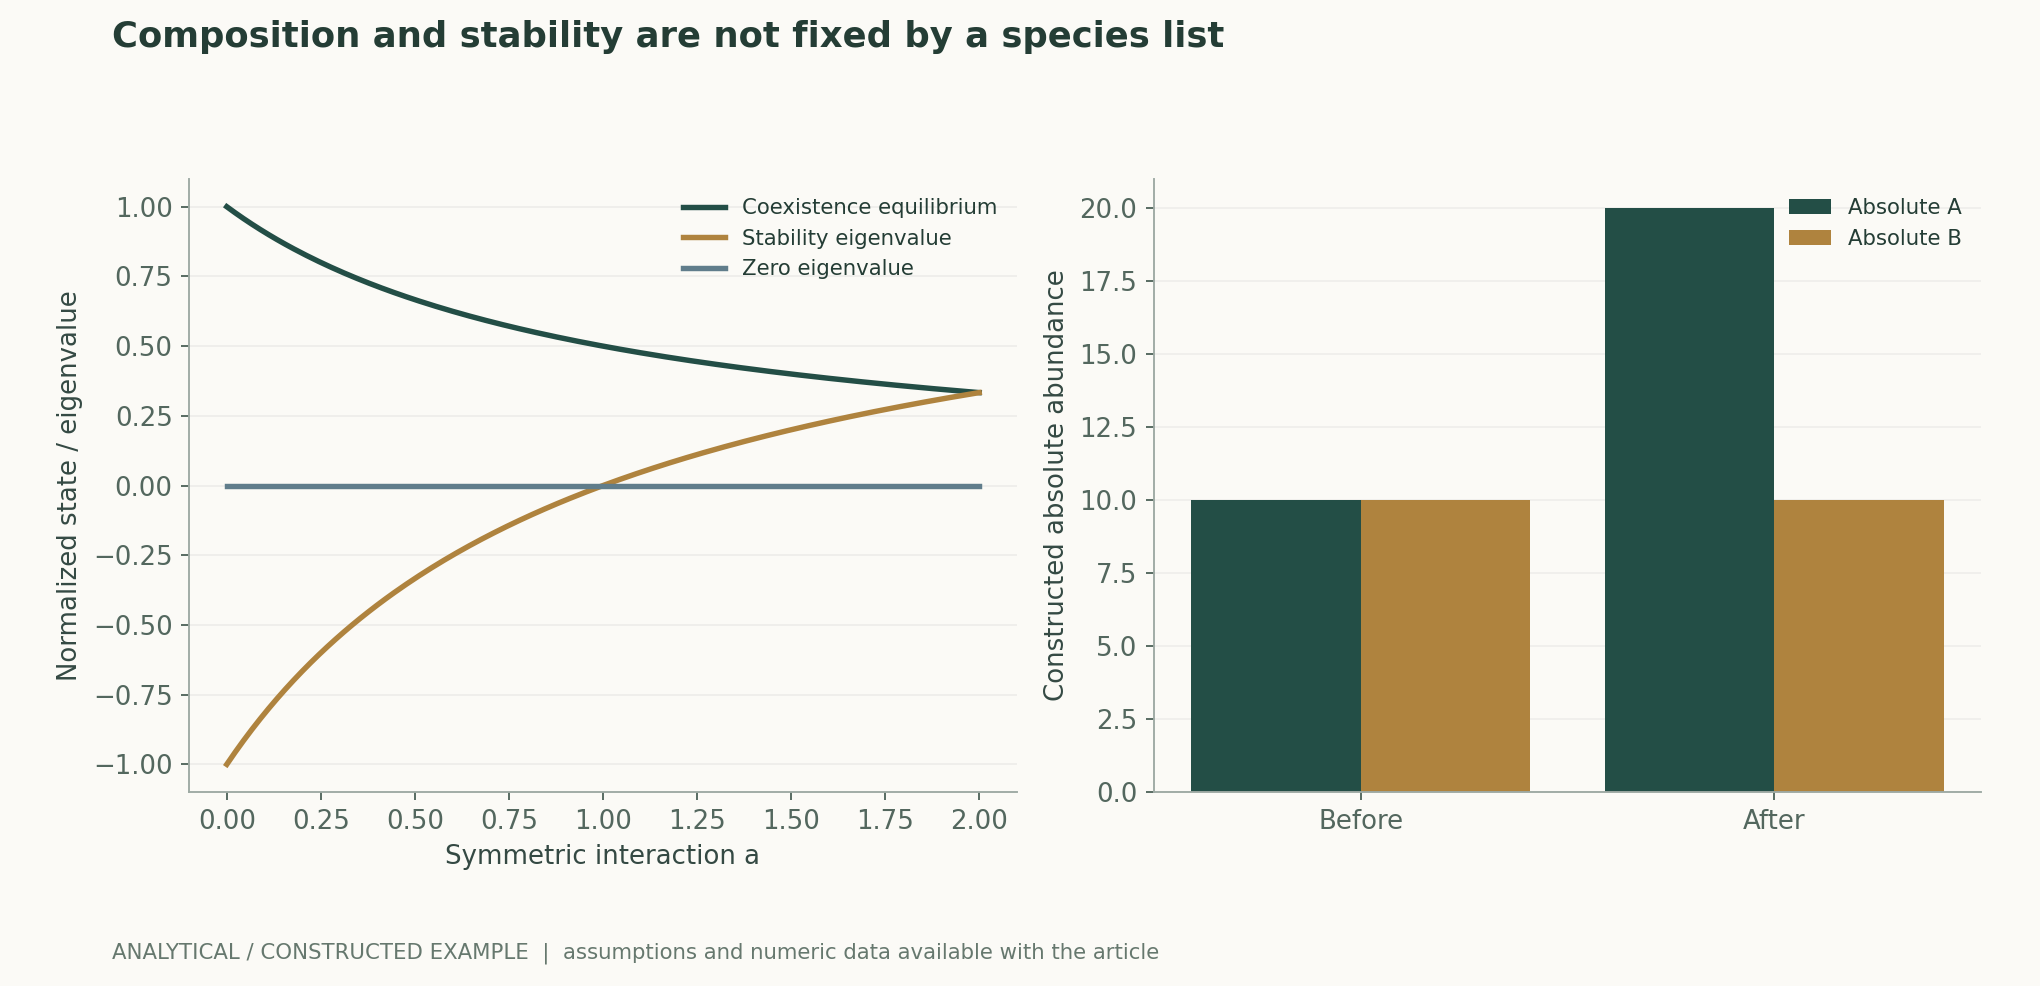
构造两个类群,初始绝对量各为10,后来A增至20而B保持10。B的相对比例从一半降到三分之一,但其绝对数量没有减少。只看组成数据可能把这种变化误判为B受到抑制。图中示例说明归一化的数学后果,不代表任何真实菌群;实际研究应尽可能加入绝对量校准并保存总量信息。作者分析与复核建议 / Author analysis
组成相关不能唯一决定互作
总和固定会让各成分之间产生结构性依赖;共同环境变化又可能让没有直接关系的物种同步变化。负相关可能来自竞争,也可能来自其他物种扩增或检测偏差。互作推断需要时间、扰动或机制证据,而不是对丰度矩阵画出连线就完成。研究应明确每条边是统计关联、动态参数还是独立实验支持的作用。作者分析与复核建议 / Author analysis
广义Lotka–Volterra模型的角色
gLV把每个物种的增长写成自身丰度乘以环境项与其他物种线性贡献,适合形成可检查的低维假说。它不显式描述所有资源、代谢物和空间结构,因此参数常是给定环境下的有效量。模型可以预测未见扰动时才显示额外价值;在训练轨迹上拟合很好,不足以证明参数就是真实直接生物学作用。作者分析与复核建议 / Author analysis
可辨识性先于复杂优化
若多个物种在所有实验中总是一起变化,模型难以区分各自对目标的贡献。更多优化轮数并不会增加数据中不存在的信息。需要检查设计矩阵的秩、参数相关性和替代参数集合,并通过改变初始组成或外部条件提高可区分性。报告一个唯一拟合值而不展示这些诊断,会造成虚假的机制精度。作者分析与复核建议 / Author analysis
两物种竞争的解析示例
本文使用对称模型:每个物种受自身密度限制,也受系数a控制的对方影响。共存平衡为两个物种均等于1/(1+a),其局部稳定性随a跨过一而改变。这个例子说明相同互作拓扑可以因参数大小不同而具有不同动力学。图中没有真实菌株、宿主或代谢数据,不推导任何具体群落的稳定性。作者分析与复核建议 / Author analysis
稳定不等于有益
一个群落恢复很快,可能只是稳定维持了不希望的功能状态;一个短暂变化的群落也可能完成有用代谢任务。生态稳定、目标代谢和宿主结果需要不同终点。研究应先定义“好”的功能,再检验群落动态是否支持它。不能把高多样性、强定植或稳态存在自动解释成人体健康改善。作者分析与复核建议 / Author analysis
初始条件与历史依赖
即使物种列表相同,不同接种比例和先后顺序可能使系统进入不同状态。测量末点而不记录初始量,会把历史差异误归为物种属性。研究应保存初始条件、时间序列和扰动顺序,并检验是否存在多稳态。若模型只有单一稳定点,却无法解释重复实验的不同终局,需要扩展模型而非只删除异常结果。作者分析与复核建议 / Author analysis
资源介导与直接作用
一种物种可能消耗目标依赖的资源,也可能产生另一种可用物;这些作用随资源是否限制而改变。相同条件培养液中的效果与新鲜环境中的直接共培养不一定相同。本文建议把资源、代谢物与增长测量相连接,并通过独立对照检验作用路径。一个gLV正系数不能单独证明分泌了某种促进物质。作者分析与复核建议 / Author analysis
缺失物种的环境重构
移除一个成员可能通过其他成员间接改变整个网络,而非只删除一条边。低阶组合中的互作不能总是线性叠加到复杂群落。研究应比较逐个移除、重新加入与未见组合预测,同时保留绝对量和环境变化。若模型只在已见组合中成立,结论应限定为描述,而不是宣称已经掌握任意群落的可编程设计。作者分析与复核建议 / Author analysis
宿主是额外的动态系统
宿主免疫、饮食、肠道流动与空间结构可以反过来改变群落。体外结果到小鼠,再到人,具有不同证据跨度。模型应明确哪些变量没有被包含,不能用同一参数无条件跨越。本文讨论研究设计与可识别性,不提供诊断、治疗建议或个体菌群干预方案。作者分析与复核建议 / Author analysis
测量偏差与时间分辨率
采样间隔过长可能错过快速响应,检测阈值又会把低丰度成员记为零。DNA量不总等于活细胞量,不同菌种的提取和标记拷贝也可能不同。研究需要校准这些测量层,再拟合动力学。否则模型参数可能主要吸收平台差异;测量流程换了,所谓互作关系也可能随之改变。作者分析与复核建议 / Author analysis
不确定性需要预测检验
参数区间和未来状态区间不同:即使多个参数组合都能拟合旧资料,它们对某个新扰动的预测可能差异很大。应优先选择能区分这些组合的测试,并在结果出现前冻结预测。只报告训练误差下降无法判断机制是否更可信,尤其在模型自由度接近有效观察数量时。作者分析与复核建议 / Author analysis
AI群落设计的风险边界
AI可以整理候选组合与不确定性,但若训练数据只有成功群落,就会忽略失败组装和不可定植背景。更可靠的设计应保留所有候选与筛选顺序,并对未知环境拒识。模型提出的组合属于待检验假说,不是自动获得因果或临床证明。真实验证还需相应伦理与研究条件,本文不执行任何生物操作。作者分析与复核建议 / Author analysis
共同变化和因果干预
观察到某物种与目标代谢相关,可以指导后续实验,但移除该物种的效果还取决于网络补偿。因果命题必须指定干预方式、时间和背景;不同干预可能改变不同部分。研究应比较模型预测与独立干预结果,并公开不一致之处。这样才能让相关模型逐步变成受约束的机制,而不是不断重命名关联边。作者分析与复核建议 / Author analysis
解析图与复算
两物种平衡和特征值可由解析推导与直接矩阵计算相互验证,组成反例可逐项枚举。所有参数为构造,未模拟所引论文的菌株。图的目的是展示“相同拓扑不决定稳定”和“比例下降不等于绝对下降”两项逻辑事实。真实应用必须替换成有测量支持的状态、环境和误差模型。作者分析与复核建议 / Author analysis
可证伪的研究目标
值得检验的是:在留出初始组合、资源条件和独立批次后,模型能否准确预测绝对丰度与目标功能;如果参数只有在每次重拟合后才有效,就不支持可迁移设计。预先保留失败条件和替代模型,可以判断新数据增加的是机制认识,还是只让曲线变得更贴合。作者分析与复核建议 / Author analysis
结论与可交换材料
研究包应保存菌种身份的合法信息、绝对与相对量、初始条件、环境、时间、全部失败组合和模型版本。定义群落的科学价值,在于让复杂生态问题进入可重复干预,而不是把名单变成通用配方。将测量、动力学和宿主结果分层,能使AI建议形成可被独立实验推翻或支持的明确命题。作者分析与复核建议 / Author analysis
核心公式与推导
(1) gLV有效模型,参数依赖环境与观测。
LaTeX
\dot x_i=x_i(r_i+\sum_j a_{ij}x_j)(2) 对称构造竞争模型。
LaTeX
\dot x=x(1-x-ay),\quad \dot y=y(1-y-ax)(3) 共存平衡的局部特征值,a非负。
LaTeX
x^*=y^*=1/(1+a),\quad \lambda_1=-1,\quad\lambda_2=(a-1)/(a+1)(4) 组成比例不能唯一恢复绝对丰度。
LaTeX
p_i=x_i/\sum_jx_j方法与证据流程
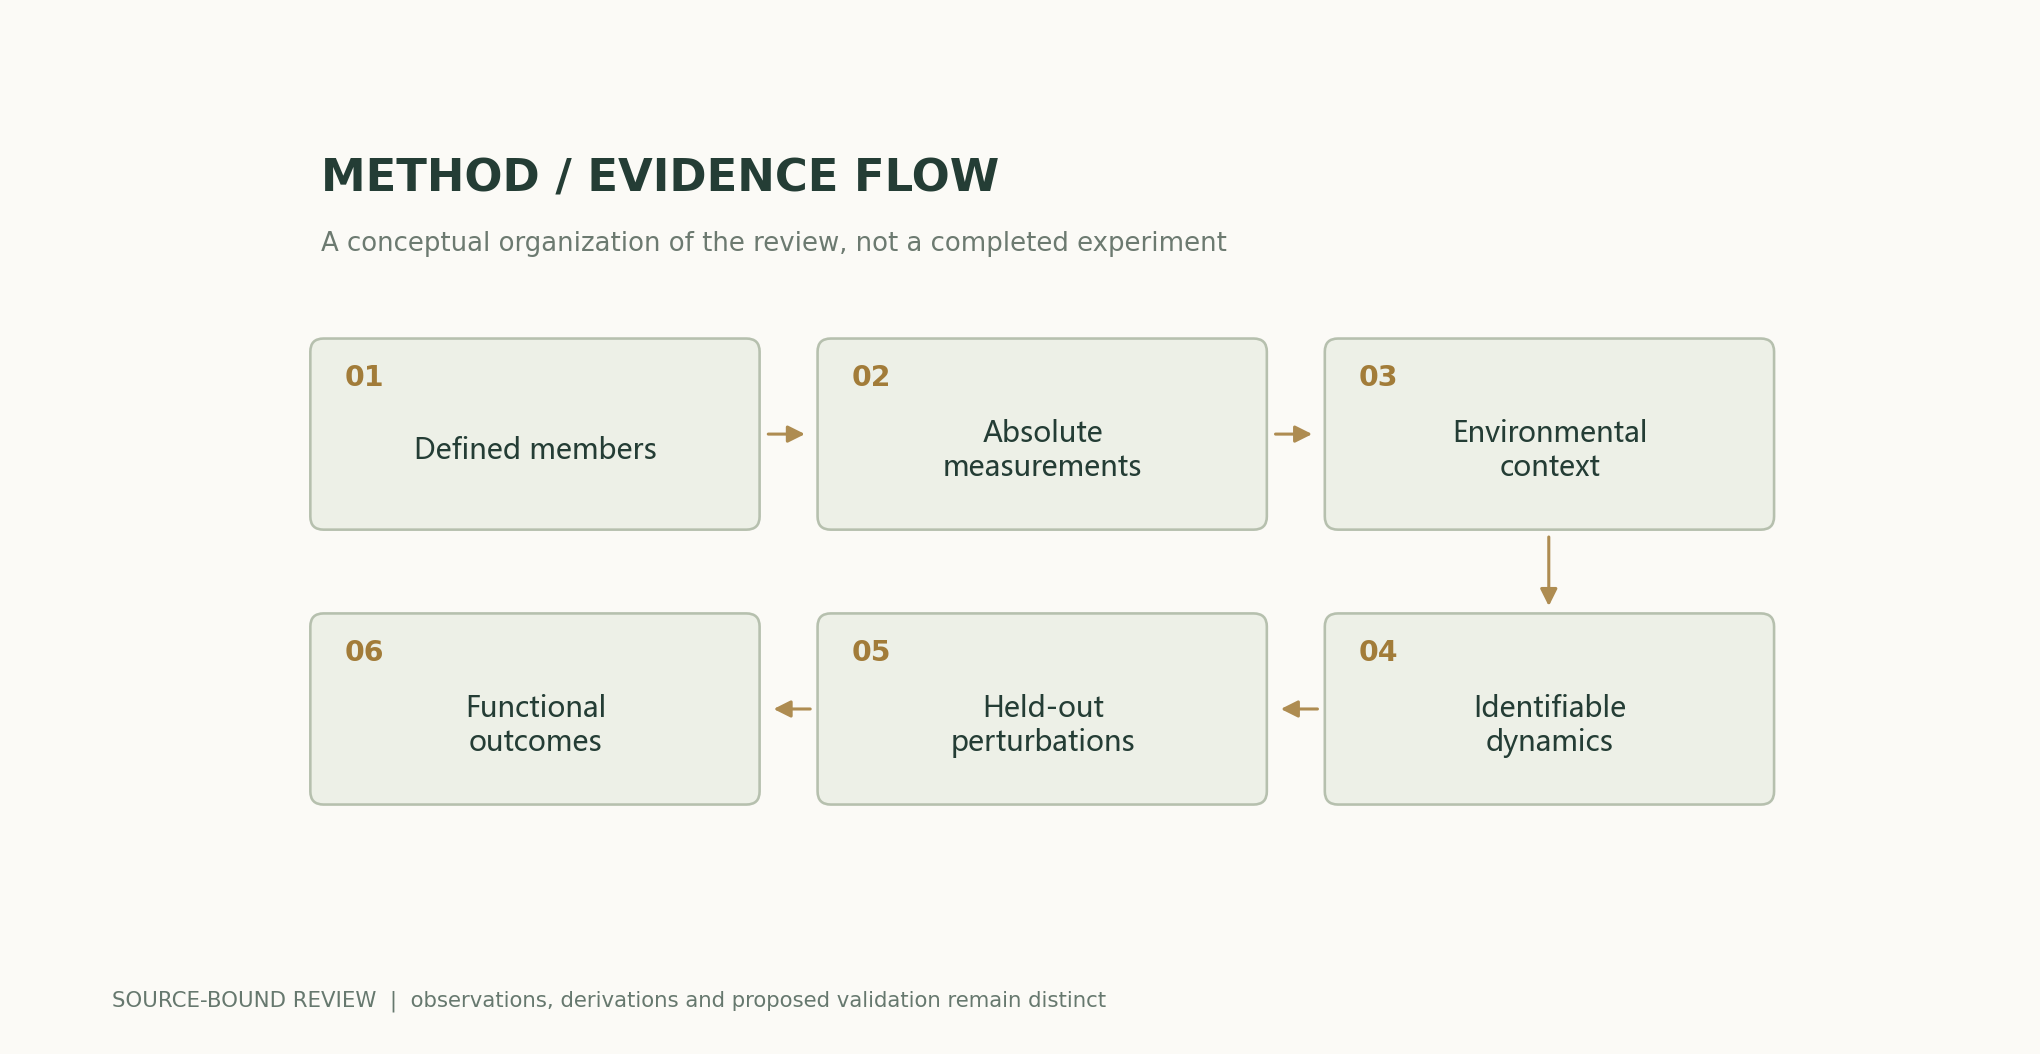
解析图与数值示例
可复算例题
a=0.5时共存x=y=2/3且特征值-1,-1/3;a=1.5时另一特征值0.2而不稳定。B绝对不变时其比例仍从1/2降至1/3。
方法比较
| 方法或口径 | 直接约束 | 仍需补足的证据 |
|---|---|---|
| 相对丰度 | 组成变化 | 绝对量及总量 |
| 时间序列拟合 | 动态关系 | 参数可辨识与外部验证 |
| 低阶组合 | 局部互作线索 | 复杂群落重构 |
| 移除/加入 | 指定背景干预 | 间接作用与环境改变 |
| 体外定义群落 | 可控生态系统 | 宿主动力学 |
| 宿主结果 | 特定模型功能 | 人体疗效与长期边界 |
复核与实验方案
- 固定目标功能与系统背景。
- 记录合法菌种身份和初始条件。
- 同时校准相对量、总量和检测阈值。
- 保存资源、时间及全部失败组合。
- 检查参数秩和替代模型。
- 预留未见组合及环境做盲预测。
- 把绝对动态与功能终点共同比较。
- 公开模型、误差及干预不一致结果。
适用范围与局限
- 无新增培养、定植或临床数据。
- gLV省略资源、空间和宿主细节。
- 构造稳定性不代表真实菌株。
- 相对丰度相关不能单独证明直接互作。
- 小鼠或体外结果不自动等于人体疗效。
原研究证据与适用范围
| 原研究结果 | 适用范围 | 来源与位置 |
|---|---|---|
| 合成群落可研究动态与环境依赖互作。 | 原群落和培养条件。 | Deciphering microbial interactions in synthetic human gut microbiome communitiesAbstract; Figs. 3–4 |
| 复杂定义群落结合体外与小鼠表征。 | 研究工具而非人体治疗证明。 | Design, construction, and in vivo augmentation of a complex gut microbiomeAbstract; hCom1 and hCom2 |
值得检验的研究问题
- 哪些扰动最能区分等价互作模型?
- 绝对量校准如何改变网络解释?
- 跨资源和宿主条件的有效参数能迁移多少?
一手来源与主张对应
- Deciphering microbial interactions in synthetic human gut microbiome communitiesOphelia S Venturelli, Alex V Carr, Garth Fisher, Ryan H Hsu, Rebecca Lau, Benjamin P Bowen, et al. · 2018-06-21Abstract; Figs. 3–4; conditioned-media analysis
- Design, construction, and in vivo augmentation of a complex gut microbiomeAlice G. Cheng, Po-Yi Ho, Andrés Aranda-Díaz, Sunit Jain, Feiqiao B. Yu, Xiandong Meng, et al. · 2022-09Abstract; hCom1 and hCom2 results
引用与文稿导出
BibTeXRISCSL JSONTXTArticle JSON
作者、版本与来源
Codex(AI)撰写的有来源研究综述与原创解析。原论文实验归原研究团队;本文计算仅检验所列公式和明示假设。 本站尚无本篇独立同行评审或原创模型、临床及物理实验记录。
首次发布:跨学科科学证据深度专题;保留逐节来源、原研究证据与作者解析的边界。
概念封面由 ImageGen 生成。科学图由随文代码与数值文件绘制,图注逐项说明假设与测量口径。
封面与科学图来源 · 数据、来源与假设 · Python · 可复算代码 · 发布与版本记录
Source revision: 500575872cce7c4b9c4062a12bb0692eb580c2da