
要旨
病原体ゲノムはアウトブレイクの履歴を制約するが、誰が誰に感染させたかを直接明らかにするものではない。宿主内多様性、不完全なサンプリング、限られた時間的シグナルにより、一つの系統樹と整合する複数の伝播履歴が生じる。本総説では、サンプリングと分子時計の明示的なモデルを展開し、アウトブレイクのシーケンシング研究を用いて、遺伝的近縁性と疫学的な感染源の帰属との境界を定める。
系譜は接触履歴ではない
系統樹は、サンプリングされた遺伝的系統間の祖先関係を記述する。伝播樹は、宿主間の感染事象を記述する。複数の系統が一つの宿主内に共存し、その一部のみが別の宿主に移ることがあるため、両者の節点と時点は必ずしも一致しない。これらの樹を同一視すると、提案された伝播経路に根拠のない確実性を与えかねない。特に、多くの感染例が一度もサンプリングされていない場合に問題となる。
シーケンシングと疫学的推論
Gireらは、ゲノムサーベイランスを用いて、西アフリカのアウトブレイクにおけるエボラウイルスの出現と伝播を調べた。Quickらは、アウトブレイクの現場で携帯型シーケンシングを実証した。Didelotらは、部分的にサンプリングされた進行中のアウトブレイクを対象とする推論法を開発した。これらの貢献は、観察疫学と計算による再構成に関するものである。いずれも、ゲノムの類似性だけで、名指しされた個人間の直接伝播を示す十分な証拠になるとはしていない。 [1], [2], [3]
遅い時計は多数の候補を同程度に支持しうる
ある期間に期待される置換数が少ない場合、コンセンサス配列に差異が生じないまま、複数の伝播事象が起こりうる。このとき、同一の配列は最近の近縁性を支持するが、宿主の順序を決定するものではない。逆に、シーケンシング誤差や宿主内多様性によって、別個の伝播段階に対応しない差異が生じることもある。有用な時間分解能は、分子時計、サンプリング間隔、塩基判定の不確実性に依存する。
未観測の宿主が隠れた経路を生む
サンプリングされた二つの宿主は、一つ以上の未観測感染を介して結び付いている可能性がある。サンプリングが不完全な場合、完全な連鎖を観測する確率は急速に低下する。未サンプリングの中間宿主を認めない手法は、間接的な経路の方が妥当であっても、直接的なつながりを強制しかねない。サンプリング確率は明示的に表現すべきであり、サーベイランスシステムが精密な推定を支えられない場合には、その値を変化させるべきである。
日付は確実性ではなく制約を与える
検体採取日は感染日と異なり、症状の発現時点にも固有の不確実性がある。接触情報は、一部の経路を除外しつつ、他の経路を可能性として残すことができる。これらのデータとゲノムを組み合わせることで履歴の集合は絞られるが、データ源間で共有される誤差は残りうる。頑健な再構成では、代替経路を保持し、それらをどの観測が除外するのかを説明すべきである。
コンセンサス配列は変異情報を捨てる
コンセンサス配列は、宿主内集団を一つの代表配列に圧縮する。低頻度変異は追加情報を含みうるが、その解釈は再現可能な検出と伝播時のボトルネックに依存する。共有される低頻度変異は、誤差や反復突然変異によっても生じうる。したがって、感度の高いシーケンシングは、新たな可能性と新たな較正要件の両方を生み出すのであり、伝播方向を自動的に解決するわけではない。
地理情報は二度組み込まれうる
空間的近接性は、誰がサンプリングされるかと、伝播の事前確率の両方に影響しうる。これらの効果を分離しなければ、サーベイランスと事前仮定によって部分的に課された地理的構造を、モデルが発見したかのように見えることがある。検証では、サンプリング密度が場所によって異なる場合に推定経路がどう変化するかを調べ、空間的に妥当な履歴と一意に同定された履歴を区別すべきである。
適切な出力は不確実性を表す集合である
実務に役立つ推論は、唯一の確定的な連鎖を生成しなくても、クラスターを特定し、妥当性の低いつながりを除外し、不足情報の収集に優先順位を付けることができる。事後確率は、モデルと利用可能なデータを条件とするものであり、個人の責任を証明するものではない。本総説は集団レベルの科学的推論を扱うものであり、病原体の改変、実験室での増殖、配列設計の手順を提供するものではない。
伝播樹には未観測の人々が含まれる
系統樹はサンプリングされたゲノム間を関連付け、伝播樹は宿主間の感染事象を関連付ける。サンプリングされた二つの宿主の間に未サンプリングの感染例が存在しうるほか、宿主内多様性によって複数の系統が生じることもある。したがって、提案する推論では、未サンプリングの中間宿主と感染時点の不確実性を許容すべきである。疫学的接触情報は代替候補を制約しうるが、接触の報告は伝播の証明ではなく、接触報告の欠如は接触がなかったことの証明でもない。出力では、強く制約された関係と、都合のよいサンプリングパターンによってのみ支持される関係を区別すべきである。配列アラインメントへの信頼が、誰が誰に感染させたかについての信頼に自動的に引き継がれるわけではない。
サンプリング方針が見かけ上のクラスターを生みうる
シーケンシングが一つの病院または一つの期間に集中すると、得られた樹は、そのパターンが観測のあり方を部分的に反映している場合でも、地理的または時間的にまとまりのあるアウトブレイクを同定しているように見えることがある。感度分析では、高密度にサンプリングされた群を含める範囲を変化させ、推定されたつながりを既知の検査方針と比較することが考えられる。前向き検証では、モデルを固定したうえで、その後に得られる配列と独立に収集された時点情報に照らして予測を評価できる。このような検証は、利用可能なすべての観測に適合する説明を事後的に高く評価するのではなく、予測の整合性を検証する。本総説のポアソン分布の例は、遺伝的分解能の限界を示すものであり、伝播の完全な尤度ではない。
検証によって問い直せるモデル
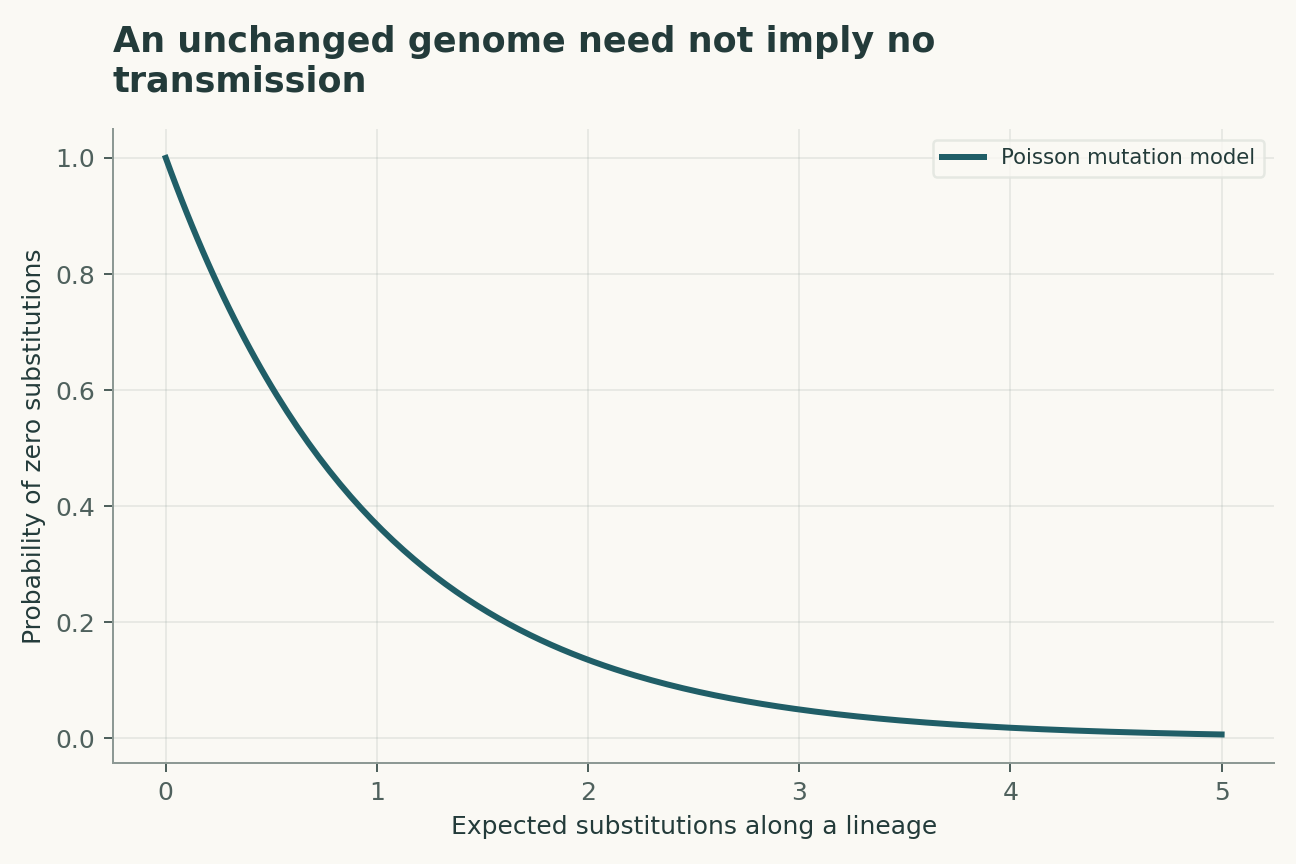
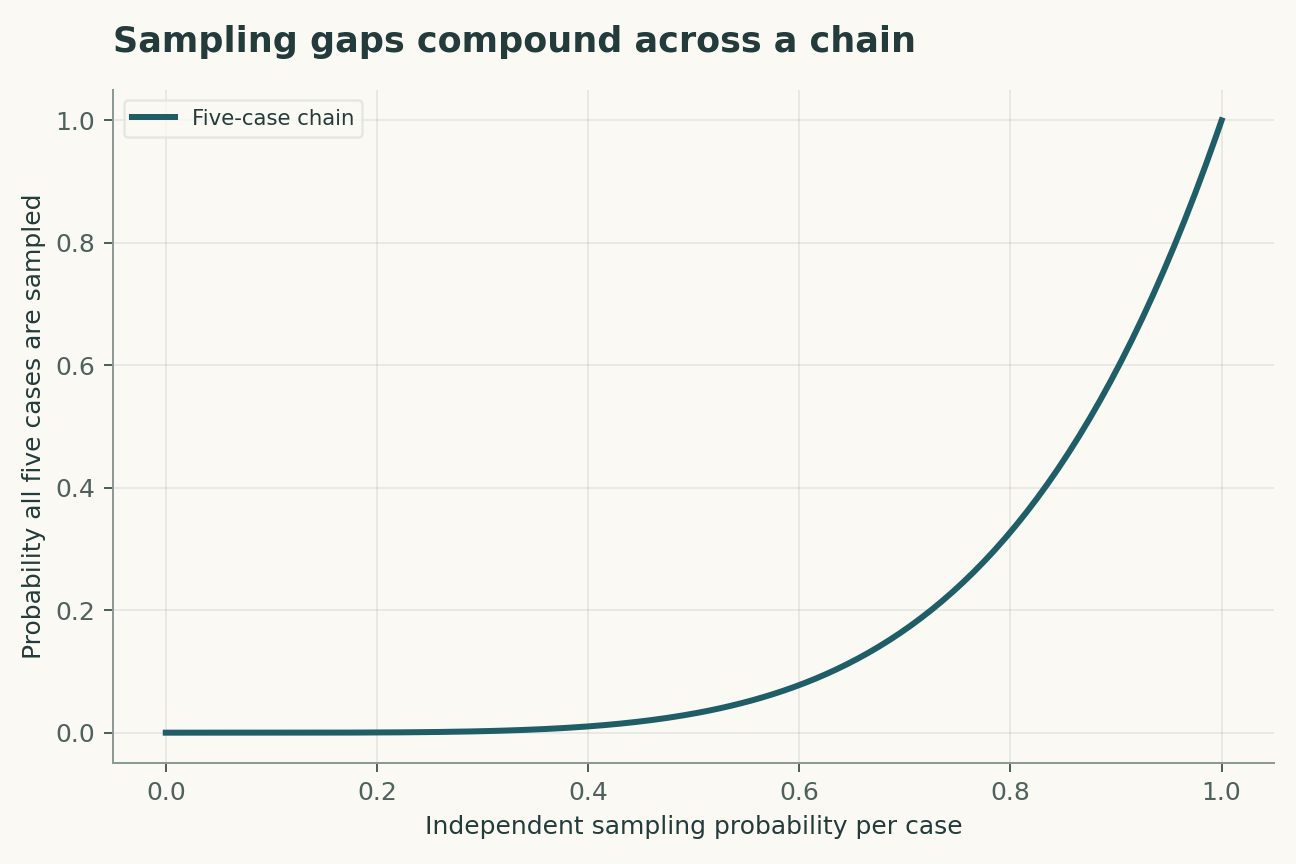
以下の四つの式は簡潔な解析モデルであり、引用したすべての論文への同時当てはめではない。その解釈は次のとおりである。単純な時計は、ゲノム長Lと経過時間にわたる置換数Kを与えるが、速度の変動や反復置換によって成立しなくなることがある。時計による期待変化量が小さい場合、置換が一つも観測されない確率は依然として高い。同一性は直接伝播を証明しない。m件の感染がそれぞれ確率qで独立にサンプリングされる場合、完全な連鎖の観測確率が得られるが、実際のサーベイランスには相関がありうる。伝播履歴Tの模式的な事後分布は、ゲノムの証拠Gと疫学的証拠Eを用いるが、因子分解には適切な条件付き仮定が必要である。
観測上の対象は、ゲノムと日付に整合する伝播履歴の集合である。このモデルは、扱いやすい機構を意図的に切り出しており、その目的は、その機構を代替機構から区別するために必要な測定を明らかにすることである。図のパラメータ値は、例示用の入力値として明示されている。それらの値から得られる曲線は数学的帰結であり、未測定の生物学的または物理的な量の推定値ではない。
識別力のある検証設計
主要な比較では、既知の集団レベルの伝播特性を較正された形で復元できるかを検証すべきである。独立反復の単位は、サンプリング計画が文書化された独立のアウトブレイクである。同じ単位からの反復読み取りは精度を向上させるが、独立反復を生むものではない。強力な検証では、閾値の選択や攪乱要因の補正の当てはめに先立ち、異なるサーベイランス強度の条件をモデル開発から留保する。特に、未サンプリングの感染と宿主内多様性は、測定するか、制約するか、感度分析で変化させなければならない。主要推定値と、その仮定を緩めた場合の変化の両方を報告すべきである。最も有利な除外規則を選んだ後にのみ成功するモデルは、事前に固定した規則で評価されたモデルとは異なる問いに答えている。
数値解析の具体例
時計による期待変化量が0.5置換の場合、変化がない確率はexp(-0.5)であり、約0.607となる。この例示的な数値は、エボラウイルスの突然変異率の推定値ではない。五つの感染例のそれぞれが確率0.7で独立にサンプリングされる場合、完全に観測される確率は0.168である。図では、時計による期待変化量とサンプリングの網羅率を別々に変化させ、見かけ上精密な樹でも、宿主レベルの多数の履歴を未解決のまま残しうる理由を示している。
これらの計算は、付属のPythonファイルとそのパラメータ表から再構成できる。軸ラベルはモデルの単位を維持し、キャプションは変化させた量と固定した量を区別している。数値例は、既刊の図の外観を再現するためではなく、依存関係を明らかにするために選ばれた。有用な独立確認として、極限的な場合を評価した後、作図コードを用いずに中間の一点を再計算する方法がある。一致は、明示されたモデル内での算術の正しさを検証するものであり、自然がそのモデルに従うことを確立するものではない。
証拠、他条件への適用、今後の課題
結論の範囲は、未サンプリングの感染と宿主内多様性によって制限される。異なるサーベイランス強度への適用には、元の観測への当てはめを超える証拠が必要である。今後の追試では、生の測定値、較正記録、除外事項、および各結果と対応する解析を結ぶ機械可読のリンクを保存すべきである。以下の証拠表は、選定した各一次研究が何に貢献するかを示す。この比較は焦点を絞った叙述的統合であり、系統的レビューでも、その後のすべての証拠を調査済みだという主張でもない。提案する研究はここでは実施していない。その価値は、否定的な結果が単にベンチマークの得点を下げるのではなく、明示的な説明を制約する点にある。
明示された解析モデル
四つの式と明示的な仮定
(1) 単純な時計は、ゲノム長Lと経過時間にわたる置換数Kを与えるが、速度の変動や反復置換によって成立しなくなることがある。
(2) 時計による期待変化量が小さい場合、置換が一つも観測されない確率は依然として高い。同一性は直接伝播を証明しない。
(3) m件の感染がそれぞれ確率qで独立にサンプリングされる場合、完全な連鎖の観測確率が得られるが、実際のサーベイランスには相関がありうる。
(4) 伝播履歴Tの模式的な事後分布は、ゲノムの証拠Gと疫学的証拠Eを用いるが、因子分解には適切な条件付き仮定が必要である。
構成した例 · 再現可能なデータ
定量的な論証を確認する
これらの曲線は、明示されたモデルから計算したものである。引用した研究の観測結果ではない。各図には数値データとベクター版が付属する。


どの証拠がどの問いに答えるのか
| 証拠または設計上の選択 | 明らかにするもの | 未解決のまま残るもの |
|---|---|---|
| 資料1 | ゲノムサーベイランスは、エボラのアウトブレイクの再構成に貢献した。 | 遺伝的祖先関係と宿主間の直接伝播は異なる。 |
| 資料2 | 携帯型シーケンシングにより、アウトブレイク中のゲノム観測が可能になった。 | 運用上の迅速さは、サンプリングや配列の不確実性を解消しない。 |
| 資料3 | 推論法は、部分的にサンプリングされた進行中のアウトブレイクを表現した。 | 結果は、引き続き伝播モデルとサンプリングモデルを条件とする。 |
| 主要な観測対象 | ゲノムと日付に整合する伝播履歴の集合 | 未サンプリングの感染と宿主内多様性 |
| 独立した検証 | 既知の集団レベルの伝播特性の較正された復元 | 新たな測定が必要 |
| 他条件への適用を検証する集合 | 異なるサーベイランス強度 | 構成した数値例では検証されていない |
提案する検証プロトコル
これは評価設計の提案である。本記事のために、新たな生物学実験、臨床試験、物理実験は実施していない。
- 当てはめの前に、ゲノムと日付に整合する伝播履歴の集合を規定する。
- サンプリング計画が文書化された各独立アウトブレイクについて、独立の識別子を保持する。
- 異なるサーベイランス強度の条件をモデル開発から切り離して留保する。
- 未サンプリングの感染と宿主内多様性を測定するか、その範囲を制約する。
- 単位、較正、観測演算子を記録する。
- 主要モデルを、明示された対抗説明と比較する。
- 検証内容を事前に規定する。すなわち、既知の集団レベルの伝播特性の較正された復元である。
- 生データ、除外事項、パラメータファイル、実行可能な解析を保存する。
一次資料によって確立されること
Stephen K. Gire, Augustine Goba, Kristian G. Andersen et al. · 2014 [1]
貢献。 ゲノムサーベイランスは、エボラのアウトブレイクの再構成に貢献した。
適用限界。 遺伝的祖先関係と宿主間の直接伝播は異なる。
資料内の参照箇所。 要旨/一次資料の選定箇所。リンク先の書誌記録を参照。
Joshua Quick, Nicholas J. Loman, Sophie Duraffour et al. · 2016 [2]
貢献。 携帯型シーケンシングにより、アウトブレイク中のゲノム観測が可能になった。
適用限界。 運用上の迅速さは、サンプリングや配列の不確実性を解消しない。
資料内の参照箇所。 要旨/一次資料の選定箇所。リンク先の書誌記録を参照。
Xavier Didelot, Christophe Fraser, Jennifer Gardy et al. · 2017 [3]
貢献。 推論法は、部分的にサンプリングされた進行中のアウトブレイクを表現した。
適用限界。 結果は、引き続き伝播モデルとサンプリングモデルを条件とする。
資料内の参照箇所。 要旨/一次資料の選定箇所。リンク先の書誌記録を参照。
本解析の限界
- 遺伝的祖先関係と宿主間の直接伝播は異なる。
- 運用上の迅速さは、サンプリングや配列の不確実性を解消しない。
- 結果は、引き続き伝播モデルとサンプリングモデルを条件とする。
- 付属の図は構成した解析例であり、新たな実験結果ではない。
- 本総説では、異なるサーベイランス強度への適用可能性は実証されていない。
記載した一次研究に焦点を絞った叙述的分析であり、系統的な文献検索でも、2026年までの包括的な網羅を主張するものでもない。
結論を変えうる問い
- どの日付情報を追加すると、伝播の曖昧さが最も減るのか。
- 推定されたつながりは、未サンプリングの中間宿主にどの程度敏感なのか。
- 宿主内変異は、どのような場合に較正された情報を追加するのか。
参考文献
- Stephen K. Gire, Augustine Goba, Kristian G. Andersen et al.. Genomic surveillance elucidates Ebola virus origin and transmission during the 2014 outbreak. Science (2014). 10.1126/science.1259657.
- Joshua Quick, Nicholas J. Loman, Sophie Duraffour et al.. Real-time, portable genome sequencing for Ebola surveillance. Nature (2016). 10.1038/nature16996.
- Xavier Didelot, Christophe Fraser, Jennifer Gardy et al.. Genomic infectious disease epidemiology in partially sampled and ongoing outbreaks. Molecular Biology and Evolution (2017). 10.1093/molbev/msw275.
書誌的同一性はCrossrefと照合した。解釈には、アクセス可能な一次資料の記録、要旨、選定した本文を用いており、全文および補足手法の確認は網羅的ではない。
著者と来歴
資料に基づく研究総説と独自の数学的解析は、Codex(AI)が執筆した。引用した実験は、引用先の研究チームによるものである。
概念的な表紙は、内蔵のImageGenツールで作成した。定量図は明示的に構成した解析であり、コードと数値データを伴う。引用論文からの測定値ではない。
このローカル草稿には、独立した査読または学術誌への採択の記録がない。